

Očitna odsotnost navzkrižnega pogovora med skeletno mišico in ledvicami, odvisnega od BMAL1- pri miših Ⅱ
Jul 19, 2024
3. Rezultati
3.1. Verifikacija modela iMS-BMAL1 KO
Theknockout za miškomodel v tej študiji je bil induciran s tamoksifenom; zato je bila učinkovitost te injekcije ocenjena za vse miši. Rekombinacijski PCR za BMAL1 na moškem skeletnem mišičnem tkivu iz iMS-BMAL1 KO je dal dva pasova za potrditev rekombinacije z injekcijo tamoksifena, en pas dolžine 431 bp, ki predstavlja floksirani alel Bmal1, in pas dolžine 572 bp, ki predstavlja produkt rekombinacije [12] (slika 1A). ). En sam pas 431 bp kaže na pomanjkanje rekombinacije, kot je bilo razvidno pri miših, zdravljenih z nosilcem. Knockout je bil preverjen pri vseh miših z rekombinacijsko PCR po evtanaziji. V tem mišjem modelu je treba BMAL1 izločiti le znotraj skeletnih mišic. Ekspresija proteina BMAL1 je bila ocenjena v odsekih ledvic, da se zagotovi, da ni učinka. Analiza imunsko označenega BMAL1 (rjavo barvanje) je pokazala, da se izražanje BMAL1 vledvica ni prizadetapri miših iMS-BMAL1 KO (slika 1B). Rjavo jedrsko obarvanje BMAL1 je bilo ugotovljeno v vseh ledvičnih celicah v obeh skupinah.
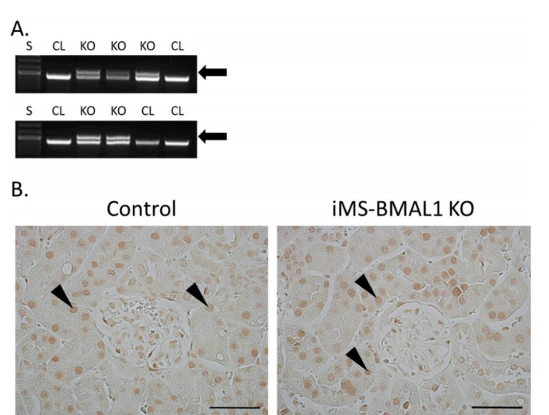
Slika 1. Ekspresija BMAL1 ni spremenjena v ledvicah iMS-BMAL1 KO. (A) Rekombinacijski PCR test v tkivu skeletnih mišic. Prednji in povratni primerji za floksirani alel Bmal1 so dali pas 431 bp, ki je bil opažen pri iMS-BMAL1 KO in kontrolnih miših. Drugi začetni primer je zaznal rekombinirani produkt s pasom 572 bp, ki je bil viden le pri iMS-BMAL1 KO. ArroWindicates pas, najden pri izločenih miših. (B) Reprezentativne slike odsekov ledvic, ki prikazujejo izražanje proteina BMAL1 pri kontrolnih in iMS-BMAL1 KO miših. Slika prikazuje ledvično skorjo. Označevalci označujejo pozitivne BMAL1-obarvane celice. Vrstica merila predstavlja 0,05 mm. Miši, prikazane na sliki, so iz kohorte napredujoče faze. S=standardna lestvica, CL=kontrolne miši, KO=miši iMS-BMAL1KO.
3.2. Tekočina in topljenec
Ravnanje v bazalnih pogojih in po izčrpanosti kalija Ker so ledvice tako odporne na fiziološke motnje, zlasti pri miših C57Bl/6 [15], smo izzvali kohorto miši z uporabo pomanjkanja kalija s hrano. Prej smo pokazali, da za ledvice specifične BMAL1 miši KO kažejo fenotip za ravnanje z natrijem kot odgovor na dieto brez K [10]. Kontrolne miši in miši iMS-BMAL1 KO so po dieti, osiromašeni s kalijem, izločile 34 % manj natrija v primerjavi z izhodiščem; vendar ni bilo razlike v izločanju natrija med obema skupinama iz urina, zbranega med aktivnim ali neaktivnim obdobjem (slika 2A, B). Kot je bilo pričakovano, je izločanje kalija padlo na minimalno raven v 24 urah po izčrpanosti kalija med aktivnim in neaktivnim obdobjem (slika 2C, D). Pri izločanju kalija ni bilo razlike med kontrolnimi mišmi in mišmi iMS-BMAL1 KO. Skupna telesna voda se je povečala za 6 % po izčrpanosti kalija v obeh skupinah (slika 2E). Poleg tega je obstajal trend pri miših iMS-BMAL1 KO, da imajo več skupne telesne vode kot pri miših iMS-BMAL1 KO z 2–3 % višjimi ravnmi kot pri kontrolah, čeprav to ni bilo pomembno (p=0).06 ).

Slika 2. Ni bilo razlik v ravnanju z natrijem med skupinama po izločanju kalija. Izločanje natrija med (A) ponoči in (B) podnevi pri moških iz kontrolne skupine in miši iMS-BMAL1 KO, zdravljenih z običajno in petdnevno dieto brez kalija. Izločanje kalija med (C) ponoči in (D) podnevi pri istih miših. Zbiranje urina je bilo opravljeno vsakih 12 h (E). Celotna telesna voda je bila normalizirana na telesno težo miši pred in po petdnevnem zdravljenju z dieto, osiromašeno s kalijem. (F) Statistična analiza za vsako ploščo na sliki 2. n=4-5. Vrednosti so povprečje + SEM. Za primerjavo skupin je bila uporabljena dvosmerna ANOVA. Sidakov test večkratnih primerjav je bil uporabljen za primerjavo med kontrolo in KO v zdravljenih skupinah. *=p < 0.05, **=p < 0,001UNaV=izločanje natrija z urinom; UKV= izločanje kalija z urinom; Normalna=normalna prehrana; LowK= dan diete, osiromašene s kalijem.
3.3. Ocena mitohondrijske funkcije

Prej so bile presnovne neučinkovitosti povezane z izbrisom BMAL1 [7,12,16,17. Da bi ugotovili, ali je učinek izločitve BMAL1 v skeletnih mišicah vplival na ledvične mitohondrije, smo najprej ovrednotili izražanje mitohondrijskega ločilnega proteina 1 (UCP1) v ledvični skorji miši iMS-BMAL1 KO v primerjavi s kontrolo. Bazalna ledvična kortikalna ekspresija proteina UCP1 je bila običajno večja pri miših iMS-BMAL1 KO v primerjavi s kontrolami, vendar ni dosegla signifikantnosti (slika 3A, B; p=0.058). Zaradi subtilnih razlik v kortikalnem UCP1 je bil izveden strožji pristop za ocenjevanje učinka iMS-BMAL1 KO na mitohondrijsko delovanje ledvic z izvajanjem visokoločljivih respirometričnih testov na izoliranih mitohondrijih izkortikalne regije ledvic. Dihalna funkcija ledvične skorje mitohondrijev v katerem koli izmerjenem stanju dihanja (L, PCI, PCI+II, ECI+II, ECII, ECIV) kot tudi razmerja nadzora pretoka so bila podobna med skupinama (slika 3C, D). Respiratorno kontrolno razmerje, indikator združenega dihanja (PCI/L), je bilo v povprečju 3,4 oziroma 3,3 za kontrolne miši in iMS-BMAL1 KO miši. Rezervna (ali rezervna) zmogljivost, razlika med največjo zmogljivostjo OXPHOS (PCI+II) in največjo zmogljivostjo ETS (ECI+II), je bila 22 % oziroma 19 % ECI+II za kontrolne miši oziroma miši iMS-BMAL1 KO in je bistveno ne razlikujejo.


3.4. Označevalci vnetja v ledvicah
Prej je bilo dokazano, da skeletne mišice povzročajo povečanje vnetja v ledvicah s sproščanjem presnovnih odpadkov. Plošče označevalcev vnetja in poškodb so bile izmerjene v ledvični skorji in meduli iMS-BMAL1 KO in kontrolnih miši. Ravni kortikalnih interlevkinov (lL) 6 so bile več kot 7-krat večje pri miših iMS-BMAL1 KO v primerjavi s kontrolami (tabela 1). Podobno je obstajal trend, da so ravni IL-6 višje v medularnem tkivu miši iMS-BMAL1 KO v primerjavi s kontrolami, vendar to ni doseglo signifikantnosti (p= 0.07). Ugotovljeno je bilo tudi, da so ravni zaviralca metaloproteinaze 1 (TlMP-1) medularnega tkiva višje pri miših iMS-BMAL1 KO, in sicer skoraj 2-krat več kot pri kontrolah (tabela 1). Pri miših iMS-BMAL1 KO ni bilo razlik v ravneh rastnega faktorja fibroblastov 23, IL-10, renina ali molekul za poškodbe ledvic v kortikalnem ali medularnem tkivu v primerjavi s kontrolnimi mišmi. Poleg tega med obema skupinama ni bilo ugotovljene razlike v kortikalnih ravneh IL-5, IL-17 ali TIMP-1 (tabela 1).

3.5. Poškodba in delovanje ledvic
Vedenjski cirkadiani stres, kot je časovni zamik, vodi do škodljivih učinkov na splošno zdravje [18,19]. Ker se zdi, da pomanjkanje kalija v prehrani ni različno vplivalo na miši iMS-BMAL1 KO v smislu ledvične izločevalne funkcije, smo domnevali, da bi lahko vedenjske cirkadiane motnje spremenile delovanje ledvic pri iMS-BMAL1 KO v primerjavi s kontrolnimi mišmi. Napredovanje faze je običajna metoda za povzročanje cirkadianih motenj [20, 21]. Miši so bile podvržene 2-tedenskemu, 14-h protokolu za napredovanje faze, da bi prestavili časovna obdobja noč/dan. GFR je bil podoben med iMS-BMAL1 KO in kontrolnimi mišmi pred in po napredovanju faze (slika 4A). Pri miših iMS-BMAL1 KO in kontrolah so opazili minimalno tubularno poškodbo po histološki oceni odsekov ledvic, zbranih po napredovanju faze (slika 4B).
3.6. Ekstrarenalni učinki iMS-BMAL1 KO
Glede na pomanjkanje fenotipa v ledvicah miši iMS-BMAL1 KO smo testirali pljuča, da bi ugotovili, ali izguba BMAL1, specifična za skeletne mišice, negativno vpliva na drugo tkivo. Pljuča so bila zbrana pri miših po faznem protokolu za pretočno citometrijo za oceno vnetnih markerjev [14]. Ugotovili smo, da je bil ustrezni profil imunomodulatornih monocitnih in nevtrofilnih mieloidnih supresorskih celic (Mo-MDSC oziroma PMN-MDSC) infiltracije celic, ki izvirajo iz kostnega mozga, povečan v pljučih miši iMS-BMAL1 KO v primerjavi s kontrolami (slika 5). ). Te ugotovitve kažejo na potencialno reprogramiranje populacije imunskih celic z motnjami v signalizaciji BMAL1 v skeletnih mišicah.
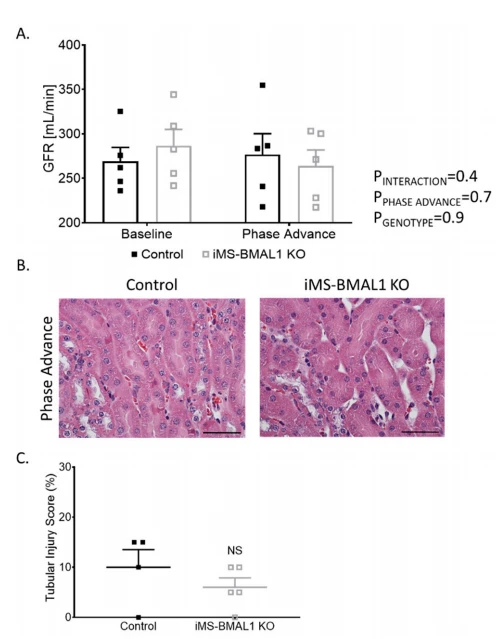
Slika 4. Motnje ure v skeletnih mišicah ne vplivajo na ledvično delovanje ali povzročijo tubularne poškodbe. (A) Hitrost glomerulne filtracije, izmerjena s podkožnim monitorjem pred in po napredovanju faze pri kontrolnih miših in miših iMS-BMAL1 KO. n=5. (B) Reprezentativne slike odsekov ledvic, obarvanih s hematoksilinom in eozinom iz kontrolnih in iMS-BMAL1 KO miši po napredovanju faze. Prikazana je kortikalna regija. Lestvica predstavlja 0,05 mm. (C) Odstotek tubulov, ki kažejo znake poškodbe v obarvanih odsekih ledvic obeh skupin miši. n=4–5. Vsi podatki so predstavljeni kot povprečje ± SEM. Dvosmerna ANOVA je bila uporabljena za primerjavo podatkov o hitrosti glomerularne filtracije skupin. Za primerjavo skupin iz podatkov o oceni tubularnih poškodb je bil uporabljen Studentov t-test. GFR=hitrost glomerularne filtracije; NS=ni pomembno

povprečje ± SEM. Za primerjavo med skupinami smo uporabili Studentov t-test. Mo-MDSC=monocitne mieloidne supresorske celice; PMN-MDSC=polimorfonuklearno

4. Razprava
Glavna ugotovitev te študije je, da delecija BMAL1 v skeletnih mišicah ni prispevala k spremembam delovanja ledvic ali povzročila vidne poškodbe ledvic v testiranih pogojih. Obstajajo različni načini, s katerimi lahko skeletne mišice negativno vplivajo na delovanje ledvic, vključno s sproščanjem presnovnih odpadkov in prispevanjem k insulinski rezistenci [22, 23]. Poleg tega motnje ure v skeletnih mišicah povzročijo fenotip staranja pri miših (še ena značilnost razvoja bolezni ledvic) [6,16]. Kljub temu, da miši iMS-BMAL1 KO kažejo značilnosti staranja in znake povečanega ledvičnega vnetja, niso zaznali poškodbe ledvic ali zmanjšanja delovanja ledvic.
S starostjo povzročene ledvične patološke spremembe vključujejo razvoj glomeruloskopije. roza, intersticijska fibroza in izguba tubulov [24,. Ta napredovanja pri poškodbi ledvic vodijo do zmanjšanja GFR in disfunkcije pri ravnanju z raztopino in vodo. V tej študiji so ocenili GFR in ravnanje s topljenci, da bi določili delovanje ledvic. Miši so izzvali z (1) spremembo kalija v prehrani, da bi spremenili ravnanje s topljenci, ali (2) spremembo nočnega/dnevnega urnika, da bi razkrili morebitne nepravilnosti v delovanju ledvic. Študije na miših in ljudeh dosledno kažejo, da pomanjkanje kalija s hrano povzroči povečanje zadrževanja natrija [25-28]. Obe skupini miši v tej študiji sta pokazali zadrževanje natrija po dieti, osiromašeni s kalijem, kot je bilo pričakovano, vendar ni bilo nobene razlike v ravnanju s topljencem med skupinama pred ali po dietni manipulaciji. GFR je bil podoben tudi med skupinama pred in po napredovanju faze. Nismo opazili nobenih znakov ledvične poškodbe, ni bilo poročil o razlikah v hranjenju ali aktivnosti med temi skupinami miši iz prejšnjih študij [7, 12]. Na splošno ni bilo sprememb delovanja ledvic, podobnih tistim, ki jih opazimo pri starem fenotipu.
V njem je veliko mitohondrijevpovezana z ledvicamiz visoko porabo kisika, ki je takoj za srcem [29]. Preskrba z ATP je izjemno pomembna za delovanje ledvic, mitohondrijska okvara pa je povezana z napredovanjem ledvične bolezni [22,30]. Na podlagi prejšnjih poročil o presnovni neučinkovitosti pri miših BMAL1-KO, specifičnih za skeletne mišice in globalnih miših [7,12,16,17], smo ovrednotili mitohondrijsko delovanje ledvic. Odsotnost BMAL1 v skeletnih mišicah in s tem povezane spremembe v tem mišjem modelu niso vplivale na mitohondrijsko dihalno funkcijo v ledvicah.
Na homeostazo elektrolitov močno vplivadelovanje skeletnih mišic, zlasti kot odziv na pomanjkanje kalija [31]. Potencialna vloga skeletne mišice BMAL1 pri znotrajceličnem premiku ravnotežja kalija kot odziv na izčrpanost kalija tukaj ni bila ocenjena. Ta študija se je osredotočila na ledvice, ki so končni regulator ravnovesja elektrolitov. Zanimivo je, da so miši iMS-BMAL1 KO pokazale manjše izločanje kalija med fazo počitka pri normalni prehrani v primerjavi s kontrolnimi mišmi. Opozoriti je treba, da med aktivno fazo, v kateri poteka večina izločanja, ni bilo nobene razlike. Poleg tega, ko so podatki o aktivni in neaktivni fazi združeni, ni razlike v 24-urnem izločanju. Omejitev te študije je, da nismo mogli oceniti kalija v serumu na koncu študije izločanja kalija s hrano. To je pomemben parameter, ki ga je treba upoštevati pri ocenjevanju navzkrižnega pogovora med skeletnimi mišicami in ledvicami.
Miši iMS-BMAL1 KO so pokazale številne značilnosti nezdravega in postaranega fenotipa, vključno s spremenjeno hojo, zmanjšano mobilnostjo, mišično oslabelostjo in oslabljenim privzemom glukoze [6,7,12,16]. Kazalniki negativnega vpliva delecije BMAL1 v skeletnih mišicah na druge organe so bili očitni. Ta študija je preučevala učinek na ledvice. Čeprav so povišane ravni TIMP-1 in IL-6 povezane z razvojembolezni ledvic[32,33], podatki v tej študiji kažejo, da delovanje ledvic ni prizadeto kljub znatnemu povečanju teh markerjev. Kot je razvidno iz povečanja monocitne in nevtrofilne infiltracije pljučnega tkiva pri miših iMS-BMAL1 KO, lahko dodatni organi, vključno s pljuči, pokažejo spremenjeno delovanje.
Dokazano je, da uporaba tamoksifena povzroča neželene stranske učinke. Pokazalo se je, da tamoksifen inducira razvoj kile pri mišjih samcih [34]. Po drugi strani pa je tamoksifen pokazal antifibrotične lastnosti pri abolezni ledvicmodel [35]. V tej študiji je bilo zdravljenje z nizkim odmerkom tamoksifena potrebno le pet dni, da bi zadostno inducirali izločanje BMAL1 iz skeletnih mišic. Miši niso bile dolgo časa na tamoksifenu. Poleg tega so bili poskusi na miših izvedeni šele pet tednov po zdravljenju s tamoksifenom. Malo verjetno je, da bi tamoksifen vplival na rezultate te študije.
5. Sklepi
Skratka, mišji samci z delecijo BMAL1 v skeletnih mišicah niso pokazali spremenjenega delovanja ledvic oz.poškodba ledvicpod preizkušenimi pogoji. Odkritje vnetja v pljučih kaže, da lahko na zunajledvične organe vpliva motnja ure v skeletnih mišicah, neodvisno od kakršnih koli sprememb v ledvicah. Na splošno so ledvice odporne na fenotip staranja, ki ga kažejo miši iMS-BMAL1 KO.
Avtorski prispevki:
Konceptualizacija, GRC, SEW, AJB, KAE in MLG; Urejanje podatkov, SEW, CAW, MAG-M., CMD, EE, K.-YC, SHM in DB; Formalna analiza, GRC, CMD, EE, K.-YC, SHM, DB, AJB, KAE in MLG; Pridobivanje sredstev, KAE in MLG; Preiskava, GRC; Metodologija, GRC, CAW, AJB in MLG; Projektna administracija, MLG; Viri, MLG; Pisanje izvirnega osnutka, GRC, KAE in MLG; Pisanje-recenzija in urejanje, GRC, SEW, CAW, MAG-M., CMD, EE, K.-YC, AJB, KAE in MLG Vsi avtorji so prebrali in se strinjali z objavljeno različico rokopisa.
Reference
1. Yoo, SH; Yamazaki, S.; Lowrey, PL; Shimomura, K.; Ko, CH; Buhr, ED; Siepka, SM; Hong, HK; Oh, WJ; Yoo, OJ; et al. Obdobje 2: Poročanje cirkadiane dinamike luciferaze v realnem času razkriva vztrajna cirkadiana nihanja v perifernih tkivih miši. Proc. Natl. Akad. Sci. ZDA 2004, 101, 5339–5346. [CrossRef] [PubMed]
2. Partch, CL; Zelena, CB; Takahashi, JS Molekularna arhitektura cirkadiane ure sesalcev. Trends Cell Biol. 2014, 24, 90–99. [CrossRef] [PubMed]
3. Gumz, ML Molekularne osnove cirkadiane ritmičnosti v ledvični fiziologiji in patofiziologiji. Exp. Physiol. 2016, 101, 1025–1029. [CrossRef]
4. Richards, J.; Gumz, ML Mehanizem cirkadiane ure v fiziologiji. Am. J. Physiol. Regul. Integr. Comp. Physiol. 2013, 304, R1053–R1064. [CrossRef] [PubMed]
5. Egstrand, S.; Mace, ML; Olgaard, K.; Lewin, E. Vaskularna cirkadiana ura pri kronični ledvični bolezni. Celice 2021, 10, 1769. [CrossRef] [PubMed]
6. Schroder, EA; Harfmann, BD; Zhang, X.; Srikuea, R.; Anglija, JH; Hodge, BA; Wen, Y.; Riley, LA; Yu, Q.; Christie, A.; et al. Notranja mišična ura je potrebna za zdravje mišično-skeletnega sistema. J. Physiol. 2015, 593, 5387–5404. [CrossRef]
7. Harfmann, BD; Schroder, EA; Kačman, MT; Hodge, BA; Zhang, X.; Esser, KA. Za mišice specifična izguba bmal1 povzroči moteno presnovo glukoze v tkivih in sistemsko homeostazo glukoze. Skelet. Muscle 2016, 6, 12. [CrossRef]
8. O'Sullivan, ED; Hughes, J.; Ferenbach, DA Staranje ledvic: vzroki in posledice. J. Am. Soc. Nefrol. 2017, 28, 407–420. [CrossRef]
9. Xie, Z.; Su, W.; Liu, S.; Zhao, G.; Esser, K.; Schroder, EA; Lefta, M.; Stauss, HM; Guo, Z.; Gong, MC Gladka mišica bmal1 sodeluje pri uravnavanju cirkadianega ritma krvnega tlaka. J. Clin. Raziskati. 2015, 125, 324–336. [CrossRef] 10. Crislip, GR; Douma, LG; Masten, SH; Cheng, KY; Lynch, IJ; Johnston, JG; Barral, D.; Glasford, KB; Holzworth, MR; Verlander, JW; et al. Razlike v prispevku ledvičnega bmal1 k na. Am. J. Physiol. Ren. Physiol. 2020, 318, F1463–F1477. [CrossRef]
11. Morla, L.; Shore, O.; Lynch, IJ; Merritt, ME; Wingo, CS Neinvazivna metoda za preučevanje razvoja volumna zunajcelične tekočine pri miših z uporabo jedrske magnetne resonance v časovni domeni. Am. J. Physiol. Ren. Physiol. 2020, 319, F115–F124. [CrossRef] [PubMed]
12. Hodge, BA; Wen, Y.; Riley, LA; Zhang, X.; Anglija, JH; Harfmann, BD; Schroder, EA; Esser, KA Endogena molekularna ura orkestrira časovno ločitev substratnega metabolizma v skeletnih mišicah. Skelet. Muscle 2015, 5, 17. [CrossRef] [PubMed]
13. Harrison, DK; Fasching, M.; Fontana-Ayoub, M.; Gnaiger, E. Redoks stanja citokroma in nadzor dihanja v mišjih in govejih srčnih mitohondrijih pri ravni hipoksije v stanju dinamičnega ravnovesja. J. Appl. Physiol. (1985) 2015, 119, 1210–1218. [CrossRef] [PubMed]
14. Oliveira, AC; Fu, C.; Lu, Y.; Williams, MA; Pi, L.; Brantly, ML; Ventetuolo, CE; Raizada, MK; Mehrad, B.; Scott, EW; et al. Kemokinska signalna os med endotelnimi in mieloidnimi celicami uravnava razvoj pljučne hipertenzije, povezane s pljučno fibrozo in hipoksijo. Am. J. Physiol. Pljučna celica Mol. Physiol. 2019, 317, L434–L444. [CrossRef]
15. Rabe, M.; Schaefer, F. Netransgeni mišji modeli bolezni ledvic. Nephron 2016, 133, 53–61. [CrossRef]


