Preslušavanje med nevronskimi in glialnimi celicami pri oksidativni poškodbi in nevroprotekciji 3. del
Mar 22, 2024
4. Mikroglija
4.1. Mikroglija v možganih
Mikroglija, ki ima številne fine in gibljive procese, ki pregledujejo parenhimsko okolje, predstavlja približno 10 % celic CNS. Vsaka celica mikroglije ima svoje ozemlje, ki ima premer približno 50 µm [66].
Mikroglija je vrsta živčnih celic, ki igrajo ključno vlogo v naših možganih. Odstranjujejo odpadne produkte okoli nevronov, ohranjajo zdravje nevronov in olajšajo komunikacijo med nevroni, kar je vse potrebno za ohranjanje spomina.
Med mikroglijo obstaja vrsta celice, imenovana "astrocit", ki ima posebno obliko in funkcijo. Spremljajo in uravnavajo povezave med nevroni ter tako pomagajo našim možganom učinkoviteje obdelovati informacije. To je podobno skrbniku računalniške sobe, ki nenehno spremlja stanje povezave omrežnih kablov in kablov, da zagotovi nemoten pretok celotnega omrežja.
Raziskave kažejo, da je mikroglija vključena tudi v proces učenja in spomina. Sproščajo nevrotransmiterje, olajšajo komunikacijo med nevroni ter izboljšajo konsolidacijo in ponovno vzpostavitev spomina. Hkrati lahko mikroglija spodbuja tudi nastanek novih povezav med nevroni in s tem izboljša sposobnost spomina.
Zato je ohranjanje zdravja in števila mikroglije v možganih ključno za ohranjanje spomina. Nastajanje in vzdrževanje mikroglije lahko spodbujamo tako, da pazimo na prehrano, se ustrezno gibamo in ohranjamo dobro miselnost. Samo z ohranjanjem dobrega delovanja mikroglije lahko naši možgani ostanejo mladi, zdravi in močni. Spomin se bo seveda izboljšal. Vidi se, da moramo izboljšati spomin in Cistanche deserticola lahko bistveno izboljša spomin, saj lahko Cistanche deserticola uravnava tudi ravnovesje nevrotransmiterjev, kot je povečanje ravni acetilholina in rastnih faktorjev. Te snovi so zelo pomembne za spomin in učenje. Poleg tega lahko Cistanche deserticola izboljša pretok krvi in spodbuja dostavo kisika, kar lahko zagotovi, da možgani prejmejo dovolj hranilnih snovi in energije, s čimer se izboljša vitalnost in vzdržljivost možganov.

Kliknite poznajte dodatke za izboljšanje spomina
Mikroglija, imenovana tamkajšnji makrofagi v osrednjem živčevju, je dolgoživa in se samoobnavljajoča celica. V zdravih možganih ima mikroglija razvejano morfologijo in je v stanju "mirovanja" ali "mirovanja" [67].
Mikroglialni procesi so podvrženi neprekinjenim ciklom razširitve in umika, skenirajo svoje okolje za motnje v homeostazi možganov in sistematično sinapsirajo za spremljanje in uravnavanje nevronske aktivnosti prek specifičnega signalnega mehanizma [68,69]. Mikroglija med patološkim stanjem možganov spremeni svojo morfologijo iz stanja mirovanja v reaktivno ameboidno stanje.
Reaktivna mikroglija, ki se razvije v fagocitno ali ameboidno mikroglijo, ima povečano velikost celičnega telesa, manj procesov, zmanjšano dolžino in razvejanost procesa ter povečano število in proliferacijo, kar kaže na tesno povezavo med morfologijo in funkcijo [70–73] (slika 2).
Mikroglija je zelo občutljiva na okoljske signale in se odziva, da ohrani svoj homeostatski fenotip na način, specifičen za bolezen in možgansko regijo. Mikroglija bele in sive snovi kažeta različno imunsko regulacijo; mikroglija, povezana s korteksom, igra vlogo pri nevrodegeneraciji, mikroglija, povezana z belo snovjo, pa ima vlogo pri de-/remielinizaciji [74].
Običajno aktivacija nevrotransmiterskih receptorjev zavira vnetno aktivacijo mikroglije in zavira proizvodnjo nenormalnih molekul in nenormalne koncentracije fizioloških molekul.
Ko se mikroglija aktivira ob možganski poškodbi ali okužbi, sproži imunske odzive in proizvede več citokinov, kemokinov in rastnih faktorjev ter uravnava ekspresijo celičnih površinskih receptorjev, kot so toll-like receptorji (TLR), fagocitni receptorji, čistilni receptorji in različni komplementarni faktorji. 75,76]. Mikroglija izraža več receptorjev za nevrotransmiterje, vključno z GABA, glutamatom, dopaminom in noradrenalinom [66,77].
4.2. Mikroglija pri oksidativni poškodbi
Med oksidativnim stresom aktivirana mikroglija proizvaja več vnetnih mediatorjev, vključno z NO in superoksidom, ki prosto prehajajo celično membrano in delujejo kot signalne molekule.
NO in superoksid lahko tvorita peroksinitrit, ki povzroči fragmentacijo DNA in oksidacijo lipidov ter povzroči smrt nevronov [78,79]. V gojeni mikrogliji proizvodnjo superoksida, ki jo katalizirajo nitrati/nitriti (NOx), inducira forbol ester, proizvodnjo NO pa spodbudi indukcija iNOS po zdravljenju z bakterijskim alipopolisaharidom (LPS) in interferonom (IFN) [80,81]. ].

Ekspresija iNOS po intrahipokampalnem zdravljenju z LPS je bila inducirana hitreje v mikrogliji kot v inastrocitih, nižja koncentracija LPS pa je bila potrebna za indukcijo iNOS v mikrogliatanu v astrocitih [82,83].
Poleg tega je arginin dobro znan fiziološki substrat NOS. Aktivirana mikroglija z nezadostno količino arginina vodi do iNOS posredovane proizvodnje NO in superoksida, ki tvorita toksičen peroksinitrit [84]. Sama indukcija iNOS ali aktivacija NOx ne povzroči bistvene škode na mikrogliji, vendar lahko sočasna proizvodnja superoksida in NO z NOx in iNOS poškoduje mikroglijo [85, 86].
V aktiviranih mikroglijah, ki ustvarjajo superoksid ob aktivaciji NOx, ravni kisika in H2O2 hitro postanejo neuravnotežene in lahko vplivajo na funkcije mikroglije. ROS olajša fagocitozo ameboidnih mikroglijskih celic in poveča tvorbo veziklov, kar so opazili pri obdelavi mikroglijskih celic s H2O2 [87]. ROS, pridobljen iz mikroglije, lahko poškoduje sosednje možganske celice.
Zato sta proliferacija mikroglije in proizvodnja ROS potencialni terapevtski tarči, ki lahko zaščitita možgane pred oksidativnimi poškodbami in nevrodegenerativnimi boleznimi [88].
4.3. Antioksidativna obramba, posredovana z mikroglijo
Da bi preprečili oksidativni stres zaradi ROS, mikroglija vsebuje visoko celično koncentracijo GSH ter izraža in uravnava različne antioksidativne encime, vključno s SOD, GPx, GR in katalazo.
Kulture možganskih celic, označene s fluorescenco, so pokazale, da mikroglija izraža višjo raven GSH kot druge vrste celic v možganih podgan [89]. Ta visoka koncentracija intracelularnega GSH v mikrogliji prispeva k njenemu antioksidativnemu obrambnemu sistemu pred poškodbami, ki jih povzročajo radikali in peroksidi. Kulture mikroglije, stimulirane s TNF, so pokazale dvakrat več GSH kot nestimulirane kulture mikroglije [90].
Vendar pa je bila celična vsebnost GSH nižja v mikrogliji, obdelani z LPS/IFN, ki inducira nastajanje iNOS, vendar je bila vsebnost GSH v mitohondrijih nespremenjena [91]. Vsebnost GSH v mikrogliji torej kaže binarni učinek, pri katerem se poveča ob izboljšanju sinteze GSH in zmanjša ob pospešeni porabi GSH, odvisno od vrste stimulacije.
SOD, drugi antioksidativni encim, so opazili z imunocitokemičnim obarvanjem v aktivirani mikrogliji po zdravljenju s kinolinsko kislino, vendar je niso odkrili v mikrogliji v bazalnih pogojih [92,93]. Specifična aktivnost MnSOD je 20- oziroma 4-krat višja v gojeni mikrogliji kot v gojenih astrocitih oziroma oligodendrocitih [94]. Pri mikrogliatiranju z LPS/IFN ali TNF za induciranje oksidativnega stresa je bila mitohondrijska ekspresija MnSOD povečana, kar je izboljšalo sposobnost celic za razgradnjo mitohondrijskega superoksida [90,95].
Povečana aktivnost SOD v aktivirani mikrogliji zmanjša tveganje za poškodbe celic zaradi hidroksilnih radikalov, pridobljenih iz superoksida, in peroksinitrita. Povečana regulacija GSH peroksidaz (GPx) v mikrogliji je prav tako ključni mehanizem proti oksidativnemu stresu. Specifična aktivnost GPx in GSH reduktaze (GR) je znatno večja v mikrogliji kot v nevronih [96–98].
Vendar pa je bila specifična aktivnost katalaze podobna in/ali nekoliko nižja v mikrogliji kot v drugih vrstah možganskih celic, vključno z nevroni, astrociti in oligodendrociti [97, 99]. Čeprav se mikroglialni GSH disulfid (GSSG) po izpostavitvi H2O2 poveča na skoraj 30 % skupnega celičnega GSH, je mikroglialni GSSG komaj zaznaven v bazalnih pogojih [98,100].
5. Preslušavanje nevronov in glij v antioksidativnem obrambnem mehanizmu
Nevroni so odvisni od stalne oskrbe z glukozo in kisikom izven možganov prek možganskega krvnega obtoka, čeprav nimajo neposrednega stika z mikrožilami. Vendar pa je 99 % površine možganskih kapilar pokrito z astrocitnimi končnimi nogami, kar kaže na to, da morajo nevroni komunicirati z astrociti, da prejmejo bistvene materiale iz cerebralne cirkulacije [101].
Preslušavanje med astrociti in nevroni je bistveno za nevronsko obrambo pred ROS. Aktivirani astrociti kažejo obojestranske lastnosti, kot sta astrocita A1 in A2. Astrociti A1 vodijo do izgube nevronov s spodbujanjem vnetja preko poti NF-kB, ki izgubi sposobnost zaščite nevronov in nadzora sinaptogeneze [102,103].
Astrociti A2 spodbujajo preživetje nevronov preko Janusove kinaze/pretvornika signala in aktivatorja signalne poti transkripcije 3 (JAK-STAT3) z uravnavanjem nevrotrofnih dejavnikov [104]. Nevroni proizvajajo glutamat, ki spodbuja sproščanje askorbata iz astrocitov med glutamatergično sinaptično aktivnostjo, nato pa askorbat vstopi nevronov zavira porabo glukoze in spodbuja transport laktata.
Antioksidativno in presnovno medsebojno delovanje med nevroni in astrociti je opisano na sliki 3. Astrociti so odgovorni za vzdrževanje in podporo nevronov z uravnavanjem oksidativnega stresa s proizvodnjo GSH in pretvorbo glukoze v laktat, ki zagotavlja energijsko podporo nevronov [105]. Intrinzični antioksidant GSH , ki nastaja v nevronih in astrocitih, deluje kot neodvisen čistilec ROS in kot substrat za antioksidant. Nevronske celice so odvisne od GSH, pridobljenega iz astrocitov, na primer nevroni so odvisni od premikanja prekurzorja GSH iz astrocitov v nevrone. Cistein je substrat, ki omejuje hitrost sinteze GSH, zunajcelični cistein pa se takoj samodejno oksidira v cistin [53].
Absorpcija cistina poteka prek transporterja za izmenjavo cistin/glutamat v astrocitih, nato pa astrociti reducirajo cistin nazaj v cistein za sintezo GSH. GSH neposredno reagira z ROS ali deluje kot substrat za GSH S-transferazo ali GSH peroksidazo [50]. Za učinkovito uporabo zunajceličnega cistina kot prekurzorja cisteina so nevroni odvisni od astrocitov za oskrbo s cisteinom, čeprav lahko nevroni sintetizirajo GSH [54,106].
Pokazalo se je, da so nevronske ravni GSH znatno višje, če jih gojimo skupaj z astrociti [107]. Pri oksidativnem stresu, ki ga povzroči H2O2-, zdravljenje z noradrenalinom ščiti nevrone s povečanjem dobave GSH iz astrocitov v nevrone prek stimulacije beta3-adrenoreceptorja v astrocitih [108]. Druge interakcije med nevroni in astrociti, ki so povezane z antioksidativno aktivnostjo, vključujejo astrocitno-nevronski laktatni prenos in recikliranje askorbata [55]. Astrociti igrajo ključno vlogo pri povezovanju nevronske aktivnosti in privzema glukoze v možgane prek anastrocitno-nevronskega laktatnega prenosnika [109].

Nevronska aktivnost sproži metabolizem glukoze v astrocitih; glukoza se z glikolizo pretvori v piruvat in pretvori v laktat, ki se sprosti iz astrocitov in prevzame nevroni za oksidativno fosforilacijo. Askorbat, ki je koncentriran v možganih, se sprosti iz glialnih rezervoarjev v zunajcelični prostor in ga prevzamejo nevroni. Visoko aktivirani nevroni ustvarjajo ROS, ki oksidirajo askorbat v dehidroaskorbinsko kislino (DHA) in čistijo ROS z prevzemom askorbata [110,111].
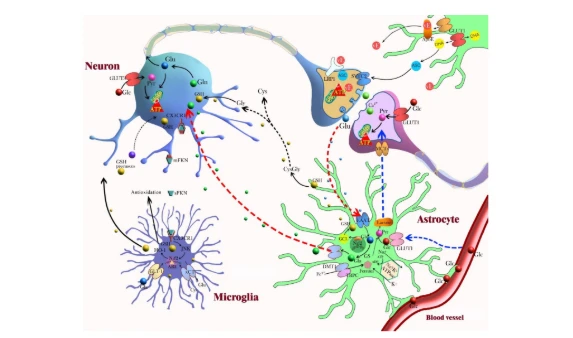
Slika 3. Ta diagram predstavlja preslušavanje nevrona in glije, ki sodeluje pri nevroprotekciji in antioksidativnem obrambnem mehanizmu. Astrocitni nevron: Astrociti vsebujejo različne antioksidativne molekule, vključno z glutationom (GSH), askorbatom, vitaminom E (VE) in encimi za razstrupljanje ROS , kot so GSH S-transferaza, GSH peroksidaza, tioredoksin reduktaza in katalaza.
Astrociti projicirajo procese končnih stopal na površino možganskih kapilar, tako da astrociti nadzorujejo gibanje molekul in celic med žilnimi deli in možgani. V laktatnem prenosniku astrociti podpirajo nevrone z uravnavanjem pretvorbe glukoze v laktat, ki zagotavlja energijsko podporo nevronov. Nevronska aktivnost sproži metabolizem glukoze v astrocitih. Glukoza se z glikolizo pretvori v piruvat in v laktat, ki se sprosti iz astrocitov in prevzame nevroni (modra puščica).
Astrociti lahko sintetizirajo GSH z aktivacijo Nrf2 in lahko prenesejo prekurzorje GSH v nevrone za sintezo GSH. Astrociti sprostijo GSH v zunajcelični prostor in nevroni prevzamejo GSH neposredno ali uporabijo zunajcelično nevronsko aminopeptidazo N za tvorbo glicina in cisteina (črna puščica). Pri privzemu in recikliranju glutamata glutamat iz sinaptičnega prostora vstopi v astrocite skozi EAAT in ga glutamin sintetaza (GS) pretvori v neaktivni glutamin. Po sprostitvi in uvozu v nevrone se lahko glutamin ponovno pretvori v glutamat (rdeča puščica).
Reciklirani askorbat lahko neposredno očisti ROS in deluje kot kofaktor za recikliranje oksidiranega vE in GSH. Astrociti sprejmejo dehidroaskorbinsko kislino (DHA), produkt oksidacije askorbata, iz zunajceličnega prostora in jo reciklirajo nazaj v askorbinsko kislino. Astrociti zajamejo in prenašajo presežek zunajceličnega K+ v astrocitni sincicij prek Na+/K+ ATPaze. Indukcija glutamat cistein ligaze (GCL) z Nrf2 poveča sintezo GSH v astrocitih, GSH pa se nato izvozi v zunajcelični medij.
Astrociti sodelujejo tudi pri sekvestraciji kovin v možganih, da preprečijo nastajanje prostih radikalov z redoks-aktivnimi kovinami. Mikroglija-nevron: Mikroglija vsebuje visoko celično koncentracijo GSH ter izraža in uravnava različne antioksidativne encime. Ekspresijo klasičnih antioksidativnih proteinov nadzira Nrf2 v mikrogliji. Hem oksigenaza-1 (HO-1), antioksidativni encim, ki ga regulira Nrf2, zavira aktivacijo NOX2.
Fraktalkin (FKN) se pretežno izraža v nevronskih celicah, mikroglija in nevroni pa izključno izražajo fraktalkinski receptor (CX3CR1); to je zanimiva signalna os za komunikacijo. Okrajšave: ARE, element antioksidativnega odziva; ASC, askorbat; ApoE, apolipoprotein E; xCT, cistein-glutamatni izmenjevalec; Cys, cistein; DHA, dehidroaskorbinska kislina; DMT1, prenašalec dvovalentnih kovin; EAAT, ekscitatorni prenašalec aminokislin; mFKN, membransko zasidran fraktalkin; sFKN, topni fraktalkin; CX3CR1, fraktalkinski receptor; Glc, glukoza; GLUT, prenašalec glukoze; Glu, glutamat; Gln, glutamin; GSH, glutation; GCL, glutamat-cistein ligaza; GS, glutamin sintetaza; GLAST, transporter glutamat aspartata; GLT1, transporter glutamata 1; Gly, glicin; HO-1, hem oksigenaza-1; JNK, c-Jun amino-terminalna kinaza; LRP, z lipoproteinskimi receptorji sorodne beljakovine; MCT, monokarboksilatni prenašalec; Nrf2, jedrski eritroidni faktor 2; Pyr, piruvat; SVTC-2, od natrija odvisen prenašalec; TRPC, prehodni receptorski potencial kanoničen.
Pri nevrotransmiterjih prekomerna stimulacija z glutamatom povzroči ekscitotoksičnost, ki je vpletena v patogenezo številnih možganskih motenj. Astrociti uporabljajo dva glavna prenašalca, ekscitatorni aminokislinski transporter1 (EAAT1)/glutamat aspartatni transporter (GLAST) in EAAT2/glutamatni transporter-1 (GLT1), za prevzem glutamata in vračanje glutamata v nevrone prek dobro uveljavljenega glutamat-glutamina cikel, ki vključuje za astrocite specifičen encim glutamin sintetazo (GS), ki pretvori glutamin v glutamat.
Če pride do neuspeha pri pretvorbi glutamina nazaj v glutamat, bi se glutamatni bazen v presinaptičnih terminalih hitro izčrpal in ekscitatorna nevrotransmisija bi bila motena [112,113]. Nezadostna oskrba GABAergičnih nevronov z glutaminom povzroči GABAergično disfunkcijo [114,115]. Glutamin v astrocitih je ključnega pomena za obnavljanje GABA z glutamat dekarboksilazo, znano kot cikel GABA-glutamina, v GABAergičnih nevronih [116].
Nevronska aktivnost in akcijski potenciali povečajo zunajcelični K+ v omejenih prostorih in vodijo do hiper-ekscitabilnih membranskih potencialov, ko ni strogih regulativnih mehanizmov [117]. Astrociti imajo veliko število membranskih K+ kanalov in visoko K+ prepustnost [118,119]. Astrociti zajamejo in prenesejo presežek zunajceličnega K+ v teastrocitni sincicij preko Na+/K+ ATPaze.
Astrociti uravnavajo tudi koncentracijo Ca2+ v nevronih prek astrocitnega signaliziranja kalcija in preslušavanja astrocitov in nevronov. Aktivacija nevronov, ki povzroči zmanjšanje zunajceličnega Ca2+, sproži prostorsko-časovne spremembe prek Ca2+ /Na+ izmenjevalec v astrocitih in ustvarja astrocitne Ca2+ valove, ki se širijo iz citoplazme v zunajcelični prostor [120,121].

Astrociti so tudi zelo mehansko občutljivi in padec zunajceličnega Ca2+ zaradi sinaptične aktivnosti vodi do sproščanja ATP iz astrocitov prek odprtja hemikanalov koneksina 43 [122–124]. Nevronska aktivnost lahko izzove presnovne spremembe v astrocitih prek dvojnega Signalizacija Na+ in Ca2+, ki sproži mobilizacijo glukoze in glikolizo za podporo delovanja nevronov. Astrocitni metabolizem je v korelaciji z visokimi presnovnimi zahtevami nevronov [125,126].
For more information:1950477648nn@gmail.com