
1. del Fenotipska raznolikost in presnovna specializacija ledvičnih endotelijskih celic
Mar 21, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-pošta:audrey.hu@wecistanche.com
Sébastien J. Dumas1,6, Elda Meta1,6, Mila Borri1,6, Yonglun Luo 2,3, Xuri Li4 , Ton J. Rabelink5 in Peter Carmeliet1,4

Cistanche tubulosa preprečuje bolezni ledvic, kliknite tukaj za vzorec
Povzetek |
Kompleksno večcelično življenje pri sesalcih temelji na funkcionalnem sodelovanju različnih organov za preživetje celotnega organizma. Theledviceigrajo ključno vlogo v tem procesu z vzdrževanjem prostornine tekočine in homeostazo sestave, kar omogoča drugim organom, da izpolnjujejo svoje naloge. Ledvični endotelij ima fenotipske in molekularne lastnosti, po katerih se razlikuje od endotelija drugih organov. Poleg tega vaskulatura odraslih ledvic obsega različne populacije večinoma mirujočih, vendar ne presnovno neaktivnih endotelijskih celic (EC), ki se nahajajo vledvicaglomeruli, skorja in medula. Vsaka od teh populacij podpira posebne funkcije, na primer pri filtraciji krvne plazme, reabsorpciji in izločanju vode in raztopljenih snovi ter koncentraciji urina. Transkripcijsko profiliranje teh raznolikih populacij EC nakazuje, da so se prilagodile lokalnim pogojem mikrookolja (hipoksija, strižni stres, hiperosmolarnost), kar jim omogoča podporo delovanja ledvic. Izpostavljenost EC angiogenim dejavnikom, ki izhajajo iz mikrookolja, vpliva na njihov metabolizem in vzdržujeledvicarazvoj in homeostazo, medtem ko endokrini dejavniki, pridobljeni iz ES, ohranjajo različne niše mikrookolja. V kontekstu ledvične bolezni kažejo ledvične EC spremembe v svojem metabolizmu in fenotipu kot odgovor na patološke spremembe v lokalnem mikrookolju, kar dodatno spodbuja ledvično disfunkcijo. Razumevanje raznolikosti in specializacije ledvičnih EK bi lahko zagotovilo nove poti za zdravljenje ledvičnih bolezni inledvicaregeneracijo.
Žilni sistem pri sesalcih je sestavljen iz dveh povezanih in zelo razvejanih mrež, ki prežemata celotno telo - vsaka s posebnimi vlogami. Krvnožilni sistem dovaja kisik in hranila v parenhimska tkiva in olajša odstranjevanje odpadkov, imunski nadzor in promet z imunskimi celicami, koagulacijo in proizvodnjo endokrinih signalov za vzdrževanje in regeneracijo tkiva1. Nasprotno pa limfni vaskularni sistem odvaja ekstravazirano intersticijsko tekočino iz prepustnih krvnih kapilar nazaj v vene in olajša promet imunskih celic in transport lipidov2. Vse krvne žile so obložene s krvnimi endotelijskimi celicami (BEC, v nadaljevanju EC), medtem ko limfne endotelijske celice (LEC) tvorijo najbolj notranjo plast limfnih žil – pri čemer vsaka populacija podpira svoje naloge, specifične za vaskulaturo. Vendar pa heterogenost endotelija daleč presega široke razlike med krvnim in limfnim endotelijem. Zlasti EC iz različnih organov kažejo edinstvene molekularne profile, ki podpirajo specifične funkcije organa3–6. Theledvicakoristiiz visoko specializirane vaskulature, ki je tesno povezana z epitelijskim sistemom ledvic7. Natančneje, fenotipsko različne populacije ledvičnih endotelijskih celic (REC) soobstajajo v treh anatomskih in funkcionalnih predelihledvica, glomeruli, skorja in medula – kjer podpirajo specifične naloge ledvic8,9. Pomembno je, da je tehnološki napredek omogočil preučevanje heterogenosti REC na ravni ene celice, kar zagotavlja nov vpogled v njihove posebne vloge pri zdravju in bolezni ledvic6,10,11.
Theledvicaje ključnega pomena za vzdrževanje homeostaze organizma, uravnavanje količine in sestave telesnih tekočin7. Ledvice prejmejo 20–25 odstotkov minutnega volumna srca in imajo stereotipno strukturo krvnih žil. Ta arhitektura ne omogoča le dostave kisika in hranil vledvice, omogoča pa tudi sodelovanje pri filtraciji krvne plazme, reabsorpciji ionov in metabolitov iz filtrata, izločanju ionov in metabolitov v primarnem urinu ter koncentraciji urina.7,8. Ti visoko orkestrirani procesi omogočajo natančno nastavitev volumna zunajcelične tekočine, krvnega tlaka, osmolalnosti in koncentracije ionov7,8. Ledvice uravnavajo tudi ravni presnovkov v obtoku, ne samo z izločanjem presnovnih odpadkov, ampak tudi s sproščanjem glukoze (preko glukoneogeneze) in aminokislin, na primer12. Organi sesalcev nenehno izmenjujejo presnovke prek obtoka, s selektivno uporabo za podporo lastnih presnovnih dejavnosti12.
V skladu s tem presnovne funkcije EC v različnih organih verjetno kažejo razlike, specifične za organe, kar podpirajo ugotovitve iz analiz metaboličnih transkriptomov EC v različnih organih6. Poleg tega presnovna plastičnost EC omogoča prilagajanje in odziv na okoljske spremembe glede na njihove presnovne potrebe in funkcije 3,13. Pojavljajoči se dokazi kažejo, da so specializirani REC-jiledvicaprilagodijo svoj presnovni transkriptom za podporo delovanja ledvic10.
Disfunkcija REC spremlja akutno ali napredujočo izguboledvicafunkcijo14,15. Ta disfunkcija je povezana s povečanjem arterijske vazokonstrikcije in zmanjšanjem ledvičnega krvnega pretoka, pridobitvijo provnetnih in protrombotičnih fenotipov, ki spodbujajo adhezijo in infiltracijo imunskih celic ter tvorbo mikrotrombov, disociacijo muralnih pericitov od endotelijskih plast, razpad endotelijske pregrade, ki povzroči intersticijski edem, redčenje peritubularnih kapilar (kar spodbuja ledvično hipoksijo) in prehod endotelija v mezenhim, kar prispeva k ledvični fibrozi 16, 17, kar kaže na to, da je endotelij lahko usmerjen v zaščito pred ledvicami. poškodbe in/ali za regeneracijo delovanja ledvic.
Ta pregled povzema naše trenutno razumevanjeledvicavaskulature, ki se osredotoča na nedavni napredek v našem razumevanju fenotipske, molekularne in presnovne heterogenosti REC v povezavi z njihovim mikrookoljem. Razpravljamo tudi o potencialni uporabi ciljanja na metabolizem REC kot terapevtske strategije vledvicabolezniali za regeneracijo ledvic.
Ključne točke
• Endotelij se med različnimi organi razlikuje, verjetno zato, da podpira različne funkcije organov.
• V ledvičnih glomerulih, skorji in meduli soobstaja več specializiranih fenotipov endotelijskih celic; ti delujejo tako, da podpirajo glomerulno filtracijo, reabsorpcijo in izločanje ionov in metabolitov ter koncentracijo urina.
• Različna lokalna mikrookolja vledvicaoblikujejo molekularno in presnovno heterogenost ledvičnega endotelija; nasprotno pa endokrini dejavniki, ki izvirajo iz endotelijskih celic, vzdržujejo niše različnihledvicamikrookolja.
• Presnova ledvičnih endotelijskih celic se lahko spremeni v kontekstuledvicapoškodb in bolezni, deloma kot posledica sprememb v mikrookolju.
• Boljše razumevanje fenotipske raznolikosti in presnovne specializacije ledvičnih endotelijskih celic lahko pomaga pri identifikaciji novih tarč zazdravljenjeledvicabolezniinledvicaregeneracijo.
Heterogenost ledvičnega endotelija
Anatomija ledvičnih žil
Theledvicase oskrbuje s krvjo preko ledvične arterije, ki po vstopu vledvicapreko ledvičnega hiluma se razveji v segmentne, interlobarne, arkuatne in interlobularne arterije (slika 1a) in na koncu v aferentne arteriole, ki so žile z visokim uporom, odgovorne za nadzor glomerularnega krvnega pretoka in hitrosti glomerularne filtracije (GFR) 18. Iz aferentnih arteriol vstopi kri v glomerularni snop – mrežo visoko fenestriranih glomerulnih kapilar, kjer pri odraslih ljudeh poteka ultrafiltracija krvne plazme s hitrostjo ~120–140 ml/min, kar omogoča, da raztopine z nizko molekulsko maso prehajajo iz glomerularne kapilar v Bowmanov prostor19. Potem ko je bil del plazme filtriran, kri zapusti glomerularni šop skozi eferentne arteriole, da vaskularizira distalne in proksimalne zavite tubule in tvori kortikalno peritubularno kapilarno mrežo. Kri v peritubularnih kapilarah je obogatena z raztopljenimi snovmi z visoko molekulsko maso in ima nizko vsebnost tekočine zaradi izgube tekočine med glomerularno ultrafiltracijo. Tako so peritubularne kapilare namenjene reabsorpciji vode, ionov in bistvenih hranil iz proksimalnega7,20in distalnih tubulih21. Več ionov, kot sta H plus (ref. 22) in K plus (ref. 23), ter molekule, kot je kreatinin24in presnovki zdravil25— ki jih glomerularne kapilare niso popolnoma filtrirale, vendar jih je treba še izločiti iz telesa — se premaknejo iz peritubularnih kapilar v epitelne celice proksimalnih20 ali distalnih tubulov, da se izločijo in odstranijo z urinom21. Eferentne arteriole iz jukstamedularnih nefronov vodijo do padajoče vase recte (DVR), ki se povezuje z ascendentno vazo recto (AVR) preko kapilarnih pleksusov. AVR in DVR tečeta protitočno Henlejevi zanki in sodelujeta pri medularni protitočni izmenjavi, ki je, kot je opisano kasneje, potrebna za vzdrževanje osmolarnega gradienta za koncentracijo urina26. Sčasoma se kortikalni in medularni kapilarni sistem skupaj z AVR združita v venski sistem na kortikomedularnem spoju. Natančneje, ledvična venska vaskulatura odvaja kri iz peritubularnih kapilar in AVR v interlobularne in arkuatne vene in nato v interlobarne vene, kar na koncu tvori ledvično veno, ki izhaja izledvicahiluma in se končno razveji v spodnjo votlo veno7.
Theledvicaoskrbujejo ga tudi limfne žile, ki sledijo celotni topografijiledvicakrvno žilje27(slika 1a). Prisotni so predvsem v ledvični skorji, kjer je njihova primarna vloga odstranjevanje tekočine in makromolekul (kot je albumin) iz intersticijskega prostora med tubuli in kapilarami.28. Imajo tudi vlogo pri infiltraciji imunskih celic in poznejšem vnetju29. V glomerulih obdajajo Bowmanovo kapsulo, ne da bi prodrli v glomerularni šopek.28. Nasprotno pa so tradicionalne limfne žile redko prisotne v meduli ledvic; v tej regiji intersticijska tekočina in makromolekule odstrani AVR, ki predstavlja vrsto hibridne krvne žile z značilnostmi, podobnimi limfnim28,30.

Fenotipi ledvičnih endotelijskih celic
EC iz različnih organov so fenotipsko heterogeni3–6,31. Edinstvene lastnosti REC, zlasti glomerularnih EC, so že dolgo cenjene. Globalno transkripcijsko profiliranje EC iz miši je potrdilo obstoj organsko specifičnih transkriptomskih podpisov3,4,6. Omeniti velja, da so te študije pokazale, da se REC najbolj razlikujejo od EC iz drugih organov, vključno z možgani, srcem, pljuči, mišicami in testisi.4(slika 1b) z izražanjem genov, povezanih z interferonsko signalizacijo, kot tudi genov, ki kodirajo endokrine faktorje FGF1 in IL-33 (ref.4,6). Organsko specifična heterogenost EC verjetno temelji na njihovi molekularni prilagoditvi za izpolnjevanje posebnih funkcionalnih vlog3–6,31.
Vendar pa heterogenost REC-jev presega organotipsko raven, z izjemno raznolikostjoledvicavaskulature, kot je bilo najprej dokazano z elektronsko mikroskopijo in študijami mikromrež, nato pa z analizami ene celice6,32,33. Theledvicakorteks, glomeruli in medula vsebujejo edinstvene populacije EC (cREC, gREC in mREC). Ta raznolikost v populacijah ES bi lahko nastala zaradi izpostavljenosti različnim mikrookoljem teh regij. Na primer, glomerularni endotelij je izpostavljen visokemu žilnemu tlaku in tesno sodeluje s podociti za uravnavanje ultrafiltracije, medtem ko so mREC izpostavljeni visoki osmolarnosti in hipoksiji, ki sta povezani z vzdrževanjem osmolarnega gradienta in koncentracije urina6,9,10,32(slika 1c). Poleg medkompartmentne heterogenosti kažejo REC tudi znotrajkompartmentno heterogenost, ki jo verjetno določajo številni genetski in okoljski dejavniki, vključno z vrsto žilne postelje (arterijska, kapilarna, venska), njihovimi interakcijami z drugimi vrstami celic (npr. , gladkih mišičnih celic, pericitov, zrnatih celic, podocitov in epitelijskih celic tubulov) in njihova izpostavljenost različnim mikrookoljem znotraj istega prostora, kot je izpostavljenost različnim vrstam pretoka ali različnim stopnjam osmolarnosti34 (slika 1c). Razvoj tehnologij enocelične transkriptomike je omogočil preslikavo heterogenosti mišjih REC v zelo visoki ločljivosti6,10,11, ki razkriva do 24 transkripcijsko različnih populacij REC6,10,11. Treba je opozoriti, da je treba ugotovitve iz enoceličnih študij RNA-seq, ki so povzete spodaj, še potrditi na ravni beljakovin, tako za celovito preverjanje prostorske lokalizacije predvidenih beljakovin kot tudi za vključitev znanja o posttranslacijskih spremembah in/ali signalni mehanizmi, ki lahko vplivajo na aktivnost beljakovin. Omeniti je treba tudi dejstvo, da relativna obogatitev gena znotraj določene REC populacije, kot je določeno z enoceličnim sekvenciranjem, ne pomeni nujno, da je izražanje tega gena omejeno na to specifično celično populacijo.
Heterogenost glomerularnih ledvičnih endotelijskih celic.Theledvicaglomerul je visoko specializirana struktura, ki je odgovorna za filtracijo krvne plazme za ustvarjanje primarnega filtrata urina, hkrati pa zagotavlja, da se bistveni plazemski proteini zadržijo v krvi. Sestavljen je iz glomerularnih kapilar, ki ležijo med aferentnimi in eferentnimi arteriolami, ki so uporovne žile, ki nadzorujejo tako kapilarni krvni pretok kot tlak. Arterije nefrona so v delnem stiku z jukstaglomerularnim aparatom (JGA) – specializirano strukturo, ki obsega makulo densa distalnega zavitega tubula, zrnate celice, ki proizvajajo renin in so povezane z aferentno arteriolo, in ekstraglomerularne mezangialne celice (sl. 2a). JGA uravnava GFR enega nefrona in krvni tlak preko tubuloglomerularne povratne zveze, miogenega odziva in sproščanja renina19,35–37.
Glomerularni kapilarni endotelij je sestavljen iz edinstvenih EC s fenestracijami brez diafragme, ki omogočajo filtracijo velikih količin tekočine38 (slika 2b).
Fenestracije so velike od 50 do 100 nm in zavzemajo približno 20 odstotkov celične površine, na elektronskem mikroskopskem slikanju pa so vidne kot transcelične luknje.38. Premer teh fenestracij je teoretično dovolj velik, da omogoča prehod tekočine in velikih beljakovin v tubule. Vendar pa kapilarni gREC proizvajajo tudi debelo plast glikokaliksa, ki vsebuje negativno nabite glikoproteine in polisaharide, ki delujejo kot ovira za prehod beljakovin39,40. Poleg tega se plazemske komponente adsorbirajo v glikokaliksu in tvorijo širši plašč, imenovan endotelijska površinska plast41, ki s svojo filamentno strukturo dodatno poveča permeselektivnost glomerularne endotelne pregrade42. Pri okvari glikokaliksa dejansko opazimo albuminurijo in proteinurijo39,43,44. Skupaj s podociti kapilarni gREC sintetizirajo in imajo skupen zunajcelični matriks, znan kot glomerularna bazalna membrana (GBM), ki obsega predvsem kolagen tipa IV, laminin in sulfatirane proteoglikane42. Mutacije, ki vplivajo na sintezo katere koli komponente GBM, vodijo do proteinurije45,46. Tako kapilarni gREC, podociti in GBM tvorijo učinkovito pregrado za glomerularno filtracijo. Opozoriti je treba, da glomerularni kapilarni endotelij nima diafragme in zato ne izraža transmembranskega glikoproteina tipa II plazmalemskega vezikulo povezanega proteina 1 (PV1), ki ga kodira Plvap10 in je tipičen marker fenestriranih EC, povezanih z premostitvenimi diafragmami endotelijskega fenestre in kaveole47
Za razvoj in vzdrževanje kapilarnih gREC fenestracij je potreben vaskularni endotelijski rastni faktor (VEGF), pridobljen iz podocitov, ki deluje parakrino prek endotelnega receptorja VEGF 2 (VEGFR2, znan tudi kot KDR).48. Prekomerna ekspresija VEGF povzroči kolaps glomerulov, hitro izgubo kapilarnih gREC in masivno proteinurijo49. Tako je potrebna stroga regulacija podocitnega VEGF za vzpostavitev glomerularne vaskulature med embrionalnim razvojem in za vzdrževanje fenestracij v zrelih glomerularnih kapilarah38,42. Podobno VEGF, pridobljen iz tubularnih epitelijskih celic, omogoča vzdrževanje peritubularnega kapilarnega omrežja50
Za razliko od drugih kapilarnih EC so gREC izpostavljeni visokemu krvnemu tlaku in visokemu pretoku krvi, kar poganja proces glomerularne filtracije in izpostavlja gREC znatnemu strižnemu stresu.51. V skladu s tem gREC izražajo visoke ravni transkripta Pi16, reguliranega s strižno napetostjo (ref.6,10,11,52) (slika 2c; dodatna tabela 1). Kapilarni gREC izražajo tudi številne druge markerje10,11,32,53, vključno z Ehd3, ki kodira člana družine proteinov EHD10,11,38,54,55ki uravnava endocitno recikliranje in naj bi uravnaval recikliranje VEGFR2 v kapilarnih gREC (slika 2c), skupaj z EHD4 (ref. 54). Tako lahko EHD3 prispeva k vzdrževanju glomerularnih kapilarnih fenestracij. Kapilarni gREC kažejo tudi obogateno izražanje genov, povezanih s signalno potjo TGF –BMP (Eng, Smad6, Smad7, Xiao in Hipk2 (ref. 10, 56–58)), ki je vključena v tvorbo glomerularnih kapilar. Prekomerna ekspresija TGF povzroči proteinurijo in glomerulosklerozo59in s tem prisotnost zaviralnih SMAD, kot so tisti, ki jih kodirata Smad6 in Smad7 v gREC, lahko prepreči prekomerno signalizacijo TGF in glomerularno disfunkcijo. Nasprotno pa je BMP, pridobljen iz podocitov, ključen za normalno tvorbo glomerulnih kapilar60. Kapilarni gREC prav tako specifično izražajo Nostrin32, katerega beljakovinski produkt veže endotelno sintazo dušikovega oksida (eNOS), da sproži njeno translokacijo iz plazemske membrane v podcelične strukture, podobne mehurčkom, in oslabi proizvodnjo dušikovega oksida (NO) – pomembnega regulatorja GFR32. Poleg tega omejeno izražanje lipoproteinske lipaze (Lpl) v kapilarnih gREC kaže, da je lahko glomerularni endotelij bistvenega pomena za sproščanje maščobnih kislin v ultrafiltrat, ki bi ga lahko kasneje uporabile kot vir energije epitelne celice tubulov ali za regulacijo vsebnost lipidov v krvi ali bi lahko prispevala h kopičenju glomerulnih lipidov, kot je opaženo v patološkem kontekstu6,10,61,62. Zanimivo je, da ledvična ekspresija genov, vključenih v presnovo lipidov, korelira z GFR in vnetjem pri bolnikih zdiabetikledvicabolezen, medtem ko okvarjena oksidacija maščobnih kislin (FAO) v tubularnih celicah prispeva k razvojuledvicafibroza61,62.

Transkripcijski faktorji, kot sta SOX17 in COUP-TFII (kodirani z Nr2f2) v arterijskih in venskih REC, poganjajo transkriptomske podpise in identiteto specifičnih žilnih postelj63,64. Identiteta gREC temelji na aktivnosti vsaj dveh transkripcijskih faktorjev: GATA5 in TBX3 (ref. 10, 11, 32) (slika 2c), ki posredujeta pri pridobitvi gREC podobnega profila izražanja genov, ko sta prekomerno izražena skupaj v človeški popkovnični veni EC (HUVEC), pogosto uporabljen model EC11. Regulon GATA5 je reguliran navzgor v gREC, ne pa tudi v drugih populacijah REC10,11in selektivna delecija Gata5 v EC povzroča glomerularne lezije65. Poleg tega EC-specifična delecija Tbx3 povzroča morfogene okvare, kot so mikroanevrizme v podskupinah glomerulov, zmanjšano število kapilarnih gREC fenestracij in deformiranih procesov stopala podocitov, kar kaže na vlogo tega transkripcijskega faktorja pri ohranjanju strukturne organizacije glomerularnih kapilar11. Poleg tega sta tako GATA5 kot TBX3 vključena v uravnavanje krvnega tlaka. GATA5 vpliva na tipično vaskularno funkcijo, protein kinazo A in signalne poti NO65, medtem ko naj bi TBX3 moduliral krvni tlak z uravnavanjem izločanja renina vledvica11.
Regulacija žilnega tonusa aferentnih in eferentnih arteriol je potrebna za vzdrževanje konstantno visokega glomerulnega kapilarnega tlaka, potrebnega za glomerulno filtracijo.18. Ta regulacijski proces omogoča vzdrževanje stalne GFR kljub spremembam sistemskega tlaka in minutnega volumna srca66. Aferentne arteriole imajo eno do tri plasti vaskularnih gladkih mišičnih celic (VSMC), ki so v bližini JGA delno nadomeščene z zrnatimi celicami, ki proizvajajo renin67 (slika 2d). Heterogenost EC obstaja tudi znotraj aferentne arteriole, z nediafragmiranimi fenestracijami endotelija, ki so najbližje JGA68,69 — podobno kot pri glomerularnem kapilarnem endoteliju — verjetno za olajšanje hitrega transporta renina v kri18 (slika 2d). Izražanje Gja5 (ki kodira koneksin 40) je obogateno v tej podskupini gREC10,70in ima pomembno vlogo pri komunikaciji med endotelijem in zrnatimi celicami v JGA za uravnavanje sproščanja renina35,70,71. Ti EC so obogateni tudi z drugimi geni, vključenimi v interakcijo med celicami, kot so tisti, povezani s signalnimi potmi Wnt in Notch, Ephrin in citokini ter kemokini (slika 2c), ki lahko posredujejo pri preslušavanju med mezangialnimi celicami in/ ali zrnate celice in gREC v JGA ter potencialno prispevajo k avtoregulaciji in modulaciji krvnega tlaka10.
Nasprotno pa gREC v zgornjem (najbolj distalnem) delu aferentnih arteriol izražajo gene, ki sodelujejo pri uravnavanju bencina, kot so Edn1 (ki kodira endotelin 1), Alox12 (arahidonat 12-lipoksigenaza) in S1pr1 (sfingozin{{6 }}fosfatni receptor 1)10,72,73(slika 2c). Signalna pot S1P–S1PR1 močno uravnava aferentni arteriolski bencin z aktiviranjem sistema eNOS74–76. V skladu s to vlogo je receptor S1P obogaten z gREC v aferentnih arteriolah in ni zaznan v eferentnih arteriolah10.
V nasprotju z gREC v aferentnih arteriolah kažejo gREC v eferentnih arteriolah nižjo ekspresijo koneksina77, zlasti koneksina 37 in koneksina 40 (kodirana z Gja4 oziroma Gja5)10. Podobno kot EC iz aferentnih arteriol pa analize transkriptoma EC iz eferentnih arteriol kažejo na prisotnost dveh populacij gREC: ena je domnevno povezana z JGA (izraža gene, povezane z adhezijo in ekstravazacijo imunskih celic ter prepustnostjo EC) in drugo ki ustreza distalnemu delu eferentne arteriole (obogatene z geni, ki sodelujejo pri hiperosmolarnih odzivih)10 (slika 2c).
Ti vpogledi kažejo, da je fenotipska in funkcionalna raznolikost gREC podlaga za sposobnost teh endotelijev, da vzdržujejo GFR z aktivno modulacijo glomerularnega pretoka krvi in z zagotavljanjem učinkovitosti glomerularne filtracije. Z integracijo tubuloglomerularne povratne informacije in miogenih signalov so gREC, povezani zlasti z JGA, verjetno kritični regulatorji GFR.
Heterogenost kortikalnih ledvičnih endotelijskih celic.Poleg glomerulnega kapilarnega endotelija ter preglomerularnih in postglomerularnih aferentnih in eferentnih arteriol,ledvicakorteks vsebuje limfne žile ter velike arterije in vene skupaj z njimi povezanimi vasa vasora, postkapilarnimi venulami in peritubularnimi kapilarami. V skladu z njihovo vlogo pri reabsorpciji in izločanju raztopljenih snovi, ionov in vode so kortikalne peritubularne kapilare tankostenske kapilare, ki vsebujejo EC, ki so funkcionalno povezane s tubularnim epitelijem9 (slika 3a). V primerjavi z gREC in mREC izražajo cREC – zlasti peritubularni kapilarni EC – visoke ravni Igfbp3 (kodira insulinu podoben rastni faktor, ki veže protein 3) in Npr3 (kodira natriuretični peptidni receptor 3)10,11 (slika 3b). .
Kortikalne peritubularne kapilare izvirajo iz eferentnih arteriol in obdajajo proksimalne in distalne zavite tubule (slika 3a), zagotavljajo kisik in hranila ter prispevajo k privzemu raztopljenih snovi in reabsorpciji vode iz lumna tubula.9. Za razliko od glomerularnih kapilar peritubularne kapilarne EC izražajo Plvap, katerega proteinski produkt (PV1) se razteza skozi peritubularne kapilarne EC fenestre. Te diafragmirane fenestre imajo premer 62–68 nm in verjetno olajšajoizmenjava vode, ionov in majhnih topljencev s proksimalnimi in distalnimi tubuli9,10
Glomeruli filtrirajo približno 180 g glukoze na dan78 in v fizioloških pogojih se skoraj vsa reabsorbira v proksimalnih tubulih. Filtrirana glukoza se najprej ponovno absorbira iz lumna proksimalnih tubulov znotraj epitelijskih celic preko natrijevih glukoznih kotransporterjev (SGLT). Ko znotrajcelična koncentracija glukoze preseže koncentracijo v intersticiju, difundira v intersticijski prostor prek specifičnih olajšanih prenašalcev glukoze (GLUT), od koder se ponovno absorbira v krvni obtok79. V skladu s svojo vlogo v tem procesu peritubularni kapilarni EC izražajo višje ravni Slc2a1 (ki kodira GLUT1) kot EC drugih ledvičnih vaskularnih postelj11 (slika 3b), kar kaže, da bi lahko reabsorpcijo glukoze olajšal GLUT1 v peritubularnih kapilarnih EC.
Kortikalne peritubularne kapilare vključujejo dve populaciji EC - eno, ki izraža visoke ravni Apoe (kodira apolipoprotein E), in tisto, ki izraža malo ali nič Apoe10 (slika 3b). Populacija z visoko Apoe kaže obogateno izražanje drugih genov, povezanih s presnovo lipidov, kot sta Plpp3 in Thrsp10, 80, 81. Nasprotno pa populacija z nizko vsebnostjo Apoe izraža gene, ki kodirajo receptorje VEGF (Kdr, Flt1 in Nrp1, ki kodirajo VEGFR2, VEGFR1 oziroma nevropilin 1), beljakovine, ki vežejo inzulinu podobne rastne faktorje, in receptor (Igfbp5, Igfbp3 in Insr) in Npr3, ki kodira receptor za natriuretični peptid, ki uravnava volumen krvi in izločanje natrija 10,82–85. Trenutno ni znano, ali ti dve populaciji EC obstajata v ločenih kapilarah, ki medsebojno delujejo s proksimalnimi zavitimi tubuli ali distalnimi tubuli, ali pa obstajata v istih kapilarah.
Presenetljivo sta bili v mišji ledvični skorji opisani tudi dve dodatni kapilarni populaciji EC - populacija EC, podobna angiogenemu, in populacija, za katero je značilno izražanje genov, stimuliranih z interferonom, in genov, ki sodelujejo pri obdelavi in predstavitvi antigena10 (slika 3b). . Angiogeno podobni EC imajo lahko vlogo pri regeneraciji poškodovanih REC, medtem ko lahko z interferonom aktivirani EC sodelujejo pri imunskem nadzoru, čeprav so potrebne nadaljnje študije za raziskovanje teh možnosti10.
Za cREC v velikih arterijah je značilno izražanje gena za arterijski transkripcijski faktor Sox17 in gena za tesno povezavo Cldn5 (claudin 5), medtem ko je za cREC v velikih venah značilno izražanje transkripcijskega faktorja Nr2f2 (COUP-TFII) in fenestracijski marker Plvap6,10,11,47,63,64,86(slika 3b).
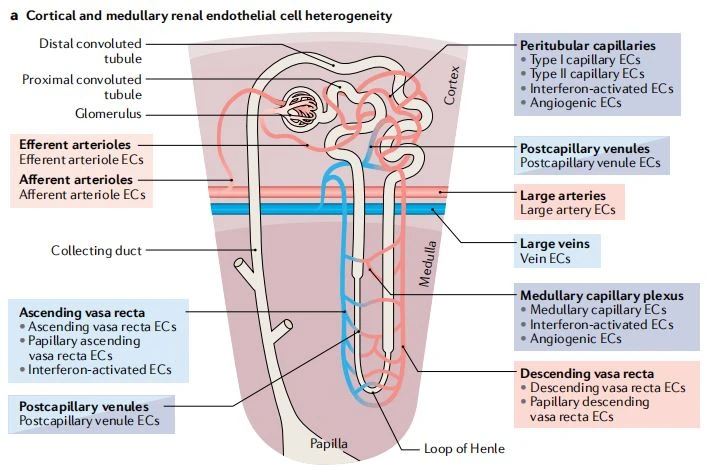


Arterijski cREC izražajo gen Sema3g, ki kodira semaforin, ki ima avtokrine in parakrine učinke na EC oziroma VSMC, gene Gja4 in Gja5, ki kodirata koneksin, ki sta sestavni del mioendotelijskih stikov, in člana družine Notch Jag1 (ref. 6, 10, 11,87–90) (sl. 3b). Velike arterije so izpostavljene visokemu krvnemu tlaku in njihov žilni tonus se spreminja kot odgovor na spremembe krvnega tlaka. Njihova sposobnost odzivanja na mehanske signale je omogočena s prisotnostjo elastične plasti v mediju tunike, ki je bogata z elastičnimi vlakni9,91in z izražanjem genov, povezanih s sestavljanjem elastičnih vlaken, kot so Eln (elastin), Ltbp4 (latentno transformirajoči rastni faktor- -vezavni protein 4), Fbln5 (fibulin 5) in Bmp4 (ref. 6,10,11,92 –95). Izražajo tudi visoke ravni Mgp (matrični Gla protein) 6, 10, ki zavira vaskularno kalcifikacijo verjetno z inhibicijo signalizacije BMP2 in BMP4 96. V skladu s svojo vlogo pri uravnavanju ledvičnega pretoka krvi cREC velikih arterij izražajo tudi gene, ki so odgovorni za regulacijo bencina, kot so Ace, Edn1 in S1pr1 (ref. 6, 10, 97–99) (slika 3b).
Vasa vasora100 olajša dovajanje kisika in hranil ter odstranjevanje odpadnih produktov, ki se sproščajo v žilni steni velikih arterij in ven. Vasa vasora REC niso bili identificirani v objavljenih študijah mišjih enoceličnih REC, verjetno zato, ker žile s premerom lumna<0.5mm (the="" diameter="" of="" normal="" vessels="" in="" mice)="" do="" not="" normally="" have="" vasa="">6,10,11,100. Izvajanje takih študij na večjih živalih ali ljudeh, ki imajo večje ledvične žile, lahko poveča verjetnost zajetja vasa vasora REC. Trenutno ni opisanih markerjev za REC, pridobljene iz vasa vasora.
Poleg krvnožilnega sistema ledvična skorja vsebuje tudi dva sklopa ledvičnih limfnih žil. Obe izvirata kot slepo končane kapilare v ledvičnem lobulu, od koder ena skupina sledi arterijam proti hilumu, da poveže hilarni in kapsularni sistem, druga pa prodre skozi kapsulo in se pridruži kapsularnim limfnim žilam 28,101 (slika 1a). Ledvične limfne kapilare je mogoče razlikovati od kapilar krvnih žil, saj so večinoma prisotne v intersticiju, imajo slepe konce in nimajo pericitov.28,29. Ledvične limfne kapilare so sestavljene iz enoslojnih LEC v obliki 'hrastovega lista', ki se delno prekrivajo 28, 29 in jih je mogoče razlikovati od BEC po izražanju več markerjev6, med katerimi so najbolj znani Pdpn (podoplanin)102, gen za kodiranje hialuronanskega receptorja Lyve1 (ref. 103), Flt4 (ki kodira VEGFR3)104 in gen za transkripcijski faktor Prox1 (ref. 105) (slika 3b) . Čeprav so ti markerji izraženi tudi v drugih tipih celic, jih je mogoče uporabiti za razlikovanje med dvema glavnima tipoma EC29. V človeškemledvica, je bil podoplanin opisan kot najbolj zanesljiv marker LEC28,29. Kljub temu nobeden od obeh ni znanledvicaPopulacije LEC so bile identificirane v objavljenih enoceličnih študijah RNA-seq6,10,11, morda zaradi njihove izgube med koraki tehnične obdelave (na primer med encimsko razgradnjo ali čiščenjem EC) in/ali ker predstavljajo premajhen delež EC v primerjavi s populacijo ledvičnih BEC. Zato so potrebne nadaljnje študije za opredelitev heterogenosti ledvičnega limfnega endotelija.
Heterogenost medularnih ledvičnih endotelijskih celic.Glavna vloga ledvične medule je koncentracija urina9. Anatomska razporeditev vasa recta in nizek krvni pretok ledvične medule (10 odstotkov celotnega ledvičnega krvnega pretoka9) preprečujeta izpiranje raztopljenih snovi, kot sta sečnina in NaCl, kar ustvarja osmolarni gradient od zunanje medule do ledvične papile. , ki je bistvenega pomena za koncentracijo urina26,106. Ta gradient se spreminja glede na status hidracije106.
Za ledvični medularni endotelij je značilno izražanje Igfbp7 (ref. 10, 11), urinskega markerjaledvicapoškodbo, ki napoveduje okrevanje ledvic po akutni poškodbi ledvic (AKI) 107, in Cd36 (ref. 10, 32), ki kodira čistilni receptor, ki je odgovoren za privzem dolgoverižnih maščobnih kislin iz obtoka 108 (slika 3c). Zato se lahko lipidi na CD36-odvisen način premikajo skozi medularni endotelij do medularnih intersticijskih celic, fibroblastom podobne celične populacije, za katero so značilne lipidne kapljice, katerih številčnost je v korelaciji s stanjem diureze109. Delecija Cd36 pri miših je bila povezana s povečanim od ledvic odvisnim tveganjem za spontano hipertenzijo10,110, vendar je oslabil razvojledvicafibrozo kot odziv na dieto z visoko vsebnostjo maščob111 (slika 3c), kar kaže na zaščitno in patološko vlogo transporta lipidov v teh procesih.
Tako kot kortikalni in glomerularni endotelij tudi ledvični medularni endotelij kaže obsežno intra-kompartmentno heterogenost10,11. DVR so žile, podobne arterijam, ki obsegajo neprekinjen endotelij, obdan s periciti ali VSMC, podobnimi gladkim mišicam, ki se odzivajo na vazoaktivne dražljaje za nadzor krvnega pretoka medularne ledvice. V skladu s fenotipom, podobnim arteriolam, DVR EC izražajo Sox17 (refs10,55), Cldn5 (refs10,55,86,112), Fbln5, Gja4 in Cxcl12 (CXCL12, znan tudi kot SDF1 – kemokinski protein ki deluje kot ligand za CXCR4 in CXCR7, izražena z VSMC in periciti)10,63,113. DVR EC izražajo tudi Slc14a1 in Aqp1, ki kodirata prenašalec sečnine B (UTB)10,11,112in vodni kanal akvaporin 1 (ref10,11,55), ki sta oba potrebna za koncentracijo v urinu114,115 (sl. 3c,d). Ti EC izražajo tudi Scin, ki kodira pepel v - beljakovini, ki veže akvaporin 2 v večproteinskem kompleksu v zbiralnih epitelijskih celicah kanala, verjetno za olajšanje trgovine z akvaporinom 2116. Sočasno izražanje Aqp1 in Scin v DVR EC kaže na podobno interakcijo v medularnem endoteliju10.
Gradient osmolarnosti vzpostavi sovražno okolje za celice ledvične medule, zlasti za tiste v ledvični papili, kjer je osmolarnost najvišja (kar ustreza stanju fiziološke hiperosmolarnosti, v kateri je osmolarnost višja kot v sistemski plazmi)117. Mišje DVR EC lahko ločimo na dva glavna fenotipa glede na njihovo lokacijo v ledvični papili ali v zunanji ali notranji meduli10 in jih razlikujemo po izražanju hiperosmolarnosti induciranih genov in genov za uravnavanje vazotona10 (slika 3c). DVR EC ledvične papile izražajo gene, ki se odzivajo na hiperosmolarnost, vključno s ciljnimi geni transkripcijskega faktorja NFAT5, induciranega s hiperosmolarnostjo, kot sta S100a4 in S100a6 (ref. 10, 118), medtem ko DVR EC iz notranje in zunanje medule kažejo obogateno izražanje Hpgd, ki kodira glavni encim, vključen v katabolizem vazoaktivnih prostaglandinov, Edn1, ki kodira vazokonstriktor endotelin 1, in Adipor2, ki kodira receptor za adiponektin, ki inducira vazodilatatorne učinke119,120 (slika 3c). Ta vzorec izražanja je skladen z izrazitejšo prisotnostjo pericitov, podobnih gladkim mišicam, v zunanjem medularnem delu DVR in s tem večjo odzivnostjo te regije na vazoaktivne dejavnike v primerjavi z nižjimi deli DVR9,121.
Za razliko od DVR so AVR fenestrirane žile, podobne venam (slika 3d). Te žile reabsorbirajo vodo iz medularnega intersticija ledvične sredice, ki se kopiči med koncentracijo urina v zbiralnih kanalih, Henlejevi zanki in DVR, ter jo zbirajo nazaj v splošni krvni obtok na način, podoben funkciji limfnih žil30. V skladu s to vlogo AVR EC izražajo venski transkripcijski faktor Nr2f2 (ref. 10, 11, 64) in Plvap - verjetno zato, da ohranijo svojo vlogo pri reabsorpciji vode10,11,47,122(slika 3c). AVR EC izražajo tudi Tek, ki kodira receptor za angiopoetin Tie2, ki je potreben za nastanek AVR med razvojem. Delecija Tek pri miših sproži hitro kopičenje tekočine in cist v medularnem intersticiju in izgubo medularnih vaskularnih snopov ter povzroči zmanjšano sposobnost koncentracije urina30.
Podobno kot DVR lahko AVR ločimo na dve transkriptomsko različni populaciji EC, ki se nahajata v papili ter v zunanji in notranji meduli. Za tiste v papili je značilno izražanje genov, ki se odzivajo na hiperosmolarnost (Cryab, Fxyd2 in Cd9 (refs10,123,124)), glikolitičnih genov (Ldha, Aldoa in Gapdh10,125,126) in Car2, ki kodira encim karboanhidraza 2 , katerega odsotnost poslabša koncentracijo urina in sproži poliurijo pri miših127 (slika 3c). Papilarni AVR ECs specifično izražajo gen Fxyd2, ki kodira podenoto Na plus /K plus ATPaze, medtem ko je alternativni gen, ki kodira podenoto Fxyd6, reguliran navzgor v AVR EC v zunanji in notranji meduli10 (slika 3c).
Papilarni deli AVR in DVR prikazujejo različne profile izražanja genov, vendar delijo izražanje več genov, odzivnih na hiperosmolarnost, vključno z Akr1b3, ki kodira aldozo reduktazo – encim, ki omejuje hitrost poliolne poti, ki je odgovoren za pretvorbo glukoze v sorbitol, inertni organski osmolit, ki je pomemben za vzdrževanje celičnega volumna v pogojih hiperosmolarnosti117. Izražajo tudi S100a6 in druge gene, kot je Fxyd5 (ki kodira drugo podenoto Na plus /K plus ATPaze), Nrgn (ki kodira beljakovino, ki veže kalmodulin, nevrogranin) in Crip1 (ki kodira protein 1, bogat s cisteinom). 10,118 - ki bi lahko bili potencialno povezani s hiperosmotskim okoljem (slika 3c).
Za ledvični medularni kapilarni pleksus, ki povezuje DVR in AVR (slika 3a), je značilen Plvap-pozitiven fenestriran endotelij in obogatena endotelna ekspresija genov, ki kodirajo receptorje VEGF, kot so Kdr, Flt1 in Nrp1. kot geni, vključeni v transport in presnovo maščobnih kislin (Cd36 in Plpp3)10 (slika 3c). mREC vključujejo tudi EC iz postkapilarnih venul, pa tudi angiogene in interferonsko aktivirane populacije EC, podobne kapilaram ledvične skorje10.

Heterogenost REC in bolezen ledvic
V fizioloških pogojih je endotelij v mirovanju - stanje, ki se v veliki meri vzdržuje s S-nitrozilacijo proteinov in transkripcijskih faktorjev z NO128,129, pridobljenim iz eNOS. Sama aktivnost eNOS je regulirana s strižno napetostjo130in znotrajcelični metaboliti, kot je substrat eNOS, l-arginin, in njegov kofaktor, tetrahidrobiopterin131. Pod posebnimi pogoji - na primer kot odziv na okužbo - se lahko to stanje mirovanja izklopi, kar povzroči aktivacijo EC in novačenje imunskih celic. Redox signalizacija in zlasti odklop encima eNOS, ki povzroči proizvodnjo superoksida namesto NO, je ključnega pomena za ta proces aktivacije. Odklop eNOS sproži kaskado, ki vodi do preoblikovanja endotelne površinske plasti in inducira izražanje receptorjev, ki lahko sodelujejo s trombociti in imunskimi celicami132. Čeprav je endotelijska aktivacija del obrambnega sistema gostitelja, se ta molekularni stroj lahko neustrezno aktivira v bolezenskih stanjih, kot je avtoimunska bolezen, ali v okolju srčno-žilnih dejavnikov tveganja ali okužbe. Opozoriti je treba, da obstaja heterogenost v odzivu REC na škodljive signale133. Na primer, pri atipičnem hemolitičnem uremičnem sindromu so mutacije faktorja H, ki zavira komplement, povezane z zmanjšano vezavo faktorja H na glomerularni endotelijski heparan sulfat134, kar povzroči glomerularno trombotično mikroangiopatijo. Drug primer je kronična humoralna zavrnitev alogenskega presadka, pri kateri se zdi, da so peritubularne kapilare glavna tarča poškodbe.135; povezana izguba peritubularne kapilarne mreže napoveduje pojavledvicaneuspeh136. V okviru pandemije COVID-19 je treba opozoriti, da AKI pogosto opazimo pri bolnikih s hudo boleznijo (prizadene do 50 odstotkov bolnikov na enotah intenzivne nege).137, pri katerih bi razširjena disfunkcija EC lahko spodbudila stopnjevanje bolezni zaradi vaskularnega puščanja, koagulopatije in poslabšanega vnetja138,139.
Poleg heterogenosti v endotelijskem aktivacijskem odzivu je lahko odziv REC na okoljske znake iz obtoka specifičen za mesto. Na primer, gREC pri bolnikih s sladkorno boleznijo tipa 1 kažejo nereguliran angiogenski odziv, ki povzroči glomerularno rast in sekundarno podocitopatijo140,141. Pri ishemični poškodbi - zlasti v peritubularnih kapilarah - endotelijska aktivacija in luščenje EC povzroči tako imenovani fenomen "no-reflow", pri čemer se perfuzija ne obnovi niti po ponovni vzpostavitvi prehodnosti, kar povzroči poškodbo tubularnih epitelijskih celic in AKI142. Klinična patologija, ki jo povzroči aktivacija REC, je podrobno obravnavana drugje.
Pojav tehnik visoke ločljivosti, kot je enocelični RNA-seq, je zagotovil nov vpogled v molekularno regulacijo fenotipske heterogenosti endotelija in procese, ki so vključeni vledvicapoškodba. Številne študije v zadnjih nekaj letih, iz naše skupine in drugih, so razvile koncept, da je heterogenost endotelija medsebojno povezana z znotrajceličnim metabolizmom3,6,10,143–145. Kot je opisano spodaj, različna mikrookolja, ki so jim izpostavljeni REC, pomagajo vzpostaviti njihovo fenotipsko raznolikost in presnovno specializacijo.
Presnovna specializacija REC
EC kažejo aktiven metabolizem, tudi ko mirujejo, da vzdržujejo procese, kot so proizvodnja energije, sinteza biomase in redoks homeostaza, ki so potrebni za vzdrževanje celovitosti vaskularne pregrade, vazoregulacijske funkcije, transporta topljenca in zaviranja tromboze in vaskularnega vnetja. Na primer, mirujoči EC vzdržujejo visoke ravni FAO, ki pomaga ohranjati celovitost vaskularne pregrade delno z regeneracijo NADPH, ki zagotavlja zaščito pred reaktivnimi kisikovimi vrstami (ROS)146. V skladu s to vlogo inhibicija FAO v EC poveča oksidativni stres, prepustnost endotelijske pregrade, infiltracijo levkocitov146 in prehod endotelija v mezenhim147, kar kaže, da je FAO potreben za vzdrževanje endotelne funkcije in fenotipa. REC-ji kažejo različne presnovne profile in transkriptome za EC-je, izolirane iz drugih organov pri miših3,6. Zanje je značilna zlasti uravnavanje genov, ki sodelujejo pri biosintezi aminokislin in pirimidina ter presnovi glukoze6. Poleg tega so nekateri presnovni geni selektivno obogateni z arterijskimi, kapilarnimi ali venskimi EC, kar kaže na presnovno heterogenost znotraj organa.6. Kot je razloženo spodaj, lahko različni mikrookoljski pogoji, ki so jim izpostavljene različne populacije REC, vplivajo tudi na njihove presnovne profile in podpirajo fenotipsko heterogenost REC kot tudi njihov odziv na dražljaje bolezni.
REC se odziva na spremembe napetosti kisika
čepravledviceso najbolj prekrvljeni organi v telesu, med prehodom krvi skozi njih se porabi manj kot 10 odstotkov kisika v obtoku.ledvice148. Theledvicamedula je izpostavljena nizki napetosti kisika, s pO2 10–20 mmHg (hipoksija) v primerjavi s 50 mmHg v ledvični skorji117 (slika 4a). Gradient kisika, ki sledi kortikopapilarni osi, je posledica več dejavnikov, vključno z arteriovenskim kisikovim šantom, ki je posledica vzporedne razporeditve AVR in DVR v meduli, omejenega pretoka krvi v medulo in znotraj nje, da se zmanjša izpiranje topljencev. , in uporabo oksidativne fosforilacije za proizvodnjo visokih ravni energije, potrebne za Na plus /K plus ATPazo, da ponovno absorbira Na plus in omogoči pravilno delovanje drugih prenašalcev raztopine celične membrane117. Tako je hipoksija neločljivo povezana z mehanizmom koncentracije urina medule10,117.

Potreben je tudi za ustreznoledvicarazvoj149. Vendar pa je hipoksija lahko škodljiva in velja za glavni vzrok AKI150 ter dejavnik tveganja za kronično ledvično bolezen (CKD)151 (slika 4a). Hipoksija ledvic je lahko posledica ishemičnih dogodkov, kot se lahko pojavijo med presaditvijo ledvice ali kot posledica nenormalne ledvične perfuzije zaradi redčenja peritubularnih kapilar, poškodbe glomerulov, ateroskleroze, disregulacije arterijskega žilnega tonusa, anemije in motene difuzije kisika zaradi fibroze152 ( Slika 4a). V vaskularnem sistemu kratkotrajna izpostavljenost hipoksiji povzroči reverzibilno modulacijo žilnega tonusa in pretoka krvi, medtem ko dolgotrajna izpostavljenost povzroči ireverzibilno preoblikovanje vaskulature in okoliških tkiv s proliferacijo in fibrozo VSMC.153. Celični odziv na hipoksijo je odvisen od inaktivacije od Fe2 plus odvisnih oksigenaz in od 2-oksoglutarata (2-OG) odvisnih oksigenaz152 ter kasnejše aktivacije od hipoksije inducibilnega transkripcijskega faktorja (HIF) odvisnega in Od HIF neodvisne poti. Izpostavljenost hipoksiji sproži aktivacijo tako HIF1 kot HIF2 v ECs154 (slika 4b). Vledvica, REC močno izražajo HIF2 ob hipoksiji, medtem ko je ekspresija proteina HIF1 omejena na mREC v papili 155–157, kjer verjetno stimulira glikolizo (slika 4b). Aktivacija HIF2 v REC na splošno posreduje pri zaščiti in okrevanju po ishemični poškodbi ledvic s spodbujanjem eritropoeze in z zaviranjem vnetja ledvic, redčenja kapilar in fibroze156 (slika 4b). Izpostavljenost REC hipoksiji v kontekstuledvicabolezen lahko torej povzroči drugačne odzive pri gREC in cREC kot pri mREC. Na primer, hipoksija spodbuja HIF1 -odvisno proliferacijo in migracijo gojenih ECs158,159; vendar pa so v nekonfluentnih pogojih gojeni gREC podvrženi mitohondrijsko odvisni apoptozi po izpostavljenosti hipoksiji155,160,161, kar kaže na neprilagojenost gREC na hipoksijo. Čeprav se zdi, da so gREC precej odporni na hipoksijo in vivo, verjetno zaradi parakrinega učinka VEGF161, pridobljenega iz podocitov, lahko hipoksija povzroči progresivno izgubo tesno spojenih proteinov okludina in ZO-1 v gREC v HIF{{ 11}}odvisen način, ki končno poveča prepustnost endotelne pregrade162. O odzivu mREC na hipoksijo je malo znanega. Zlasti mREC v AVR in DVR so v fizioloških pogojih izpostavljeni nizki napetosti kisika v papili, regulon Epas1 (ki kodira HIF2) pa je v mREC ob pomanjkanju vode reguliran navzgor, verjetno kot odziv na povečanje hipoksije, ki jo povzroča proces koncentracije urina10.
Presnovna prilagoditev EC na spremembe v napetosti kisika.V normoksičnih pogojih se EC zanašajo predvsem na glikolizo za proizvodnjo ATP in ne na mitohondrijsko oksidativno fosforilacijo163. Kot odziv na hipoksijo se ti presnovni odzivi poslabšajo z nadaljnjim povečanjem glikolize in zatiranjem mitohondrijevega dihanja (slika 4b), kar pojasnjuje, zakaj so EC odporni na hipoksijo, dokler je glukoza na voljo164. Po izpostavljenosti akutni hipoksiji, kot je ishemični dogodek, EC pokažejo hitro povečanje mitohondrijske in/ali NAD(P)H oksidazne ROS, ki stabilizira HIF1 in omogoči višji glikolitični tok164 – odzive, ki so skladni s HIF{{6 }}inducirana uravnavanje metabolizma glukoze in uravnavanje mitohondrijske aktivnosti164,165 (slika 4b). Poleg tega so analize presnovnih poti EC, izpostavljenih kronični hipoksiji, kot se lahko pojavi v meduli ali v kontekstu kronične ledvične bolezni, pokazale HIF2 -odvisno regulacijo glikolitičnih genov166. Zanimivo je, da so bili nekateri glikolitični geni, kot sta Eno1 in Aldoa, ki kodirajo encima enolazo 1 in aldolazo A, ki sta potrebna za proizvodnjo ATP in piruvata iz glukoze, povečani v večji meri v mREC kot v cREC in gRECs10. Natančneje, mREC iz papilarnega dela AVR - to je del ledvične vaskularne postelje, ki je najbolj izpostavljen hipoksiji - je pokazal največjo izraženost glikolitičnih genov Aldoa, Ldha in Gapdh med vsemi mREC pri miših10. Tako bi lahko papilarni mREC pokazali večji anaerobni glikolitični tok kot drugi REC zaradi njihovega hipoksičnega mikrookolja. Podobno imajo medularne epitelijske celice večjo zmogljivost za anaerobno glikolitično proizvodnjo ATP kot proksimalne tubularne celice117. mREC tudi povečajo več glikolitičnih genov ob pomanjkanju vode, sočasno z zgoraj omenjeno povečano aktivnostjo HIF210.
V EC je HIF2 deloma reguliran navzgor po aktivaciji mitohondrijske NAD plus odvisne deacetilaze sirtuin 3 (SIRT3) (ref. 167) (slika 4b). Izguba SIRT3 poslabša hipoksično signalizacijo v EC in povzroči okvarjeno angiogenezo in mikrovaskularno disfunkcijo, ki je posledica presnovnega preklopa iz od kisika neodvisne glikolize na mitohondrijsko dihanje. Ta presnovni preklop je povezan z zmanjšanjem izražanja 6-fosfofrukto-2-kinaze (PFKFB3), encima, ki deluje kot pozitivni regulator glikolize in tvorbe ROS167(slika 4b). Po hipoksiji SIRT3 poveča mitohondrijske antioksidativne encime na način, ki je odvisen od FOXO3 (ref.168) — transkripcijski faktor, ki ga prav tako uravnava HIF1169 (slika 4b). Zanimivo je, da antioksidantna pot SIRT3–FOXO3 deluje v gREC in preprečuje prehod iz endotelija v mezenhim inledvicafibroza v živalskem modelu hipertenzije, ki jo povzroča angiotenzin-II170(slika 4b). Farmakološki pristopi, ki povečujejo SIRT3, tudi omejujejo AKI, ki jo povzroči cisplatin, tako da ščitijo pred tubularno poškodbo in z izboljšanjemledvicafunkcijo171. Nasprotno pa Sirt3-nockout miši kažejo hujšo AKI, čeprav prispevek REC k tem učinkom ni bil določen171. Ali je ta antioksidantna pot SIRT3–FOXO3 vključena tudi v fiziološki odziv mREC na hipoksijo v meduli, je treba še ugotoviti.
Na presnovo maščobnih kislin vpliva tudi razpoložljivost kisika, saj hipoksija sproži povečanje izražanja in aktivnosti sintaze maščobnih kislin (FAS), ključnega encima, ki nadzoruje hitrost poti biosinteze maščobnih kislin, kar povzroči zmanjšanje malonilne kisline. -CoA bazen in povečanje ravni palmitata v ECs172 (slika 4b). V EC v človeški pljučni arteriji inhibicija FAS vodi do poslabšanja stabilizacije HIF1 in posledičnih sprememb v transportu in presnovi glukoze, ki jih posreduje HIF1 -, ter do ponovne vzpostavitve funkcije eNOS, kar kaže, da je lahko inhibicija sinteze maščobnih kislin koristna. za delovanje EC pri hipoksiji172(slika 4b). Vledvica, Fans – ki kodira FAS – je bil povečan v eksperimentalnem modelu kronične odpovedi ledvic in je prispeval k hipertrigliceridemiji173. Uravnavanje ventilatorjev in drugih genov, ki se odzivajo na hipoksijo, so opazili tudi priledvicakorteks mišjega modela anemije srpastih celic, ki je pokazal progresivno glomerularno in tubulno poškodbo174. Spremenjena presnova lipidov je značilnost proteinurične kronične bolezni ledvic in tako klinični kot eksperimentalni dokazi podpirajo idejo, da lahko spremenjena presnova lipidov prispeva k patogenezi in napredovanju bolezni ledvic175. Kljub temu je vloga REC pri neregulirani presnovi maščobnih kislin v kontekstuledvicabolezenje treba še dodatno pojasniti.
Hipoksija povzroči tudi regulacijo arginaze II na način, ki je odvisen od aktivacije HIF2176ali HIF1177, in zmanjša sintezo in transport njegovega substrata, arginina, v EC178,179(slika 4b). Arginaza II je metaloencim, ki je še posebej izražen vledvicein katalizira hidrolizo l-arginina v sečnino in l-ornitin. Povečanje aktivnosti arginaze II zmanjša biološko uporabnost arginina, kar duši aktivnost eNOS, zmanjša proizvodnjo endotelnega NO in sproži odklop eNOS, kar končno vodi do proizvodnje ROS in nitrozativnega stresa.176. Ti koraki so ključni pri spodbujanju endotelne disfunkcije, diabetične bolezni ledvic inledvicavnetje v kontekstu s prehrano povzročene debelosti180,181. V fizioloških pogojih se arginaza II večinoma izraža v zunanji meduli, kar kaže, da se ta presnovna prilagoditev verjetno ne pojavi pri mREC, ki so najbolj izpostavljeni hipoksiji.181.
Nazadnje, izpostavljenost papilarnih mREC akutni hipoksiji sproži sproščanje purinov in ATP, skupaj z UTP in UDP, v zunajceličnem prostoru182–184. ATP aktivira endotelijske receptorje P2Y, kar povzroči proizvodnjo NO, vazodilatacijo in povečano perfuzijo tkiva185. ATP tvori tudi adenozin po presnovi ATP z ektoencimi185,186. Pomembno je, da hipoksija sproži od HIF2 -odvisno regulacijo receptorja adenozina A2a (kodira ga ADORA2A) v EC187,188, katerega aktivacija poveča sintezo proteina HIF1, kar dodatno spodbuja ekspresijo glikolitičnega gena in glikolitični tok187(slika 4b). V večini primerov aktivacija receptorjev A2a in A2b, izraženih z EC in VSMC, posreduje pri vazodilatacijskih učinkih adenozina, ki se sprošča med hipoksijo185. Vledvica, so v različnih delih vaskulature prisotni različni adenozinski receptorji189zunajcelični ATP in adenozin pa igrata ključno vlogo pri uravnavanju ledvične hemodinamike in mikrocirkulacije.185,190. V meduli se adenozin po oksidativnem stresu proizvaja v medularnem debelem naraščajočem kraku Henlejeve zanke (TALH).191in deluje kot vazodilatator, inducira povečanje medularnega krvnega pretoka prek mehanizma, ki lahko vključuje DVR mREC192. Vendar pa v nasprotju z njegovimi učinki v večini drugih žil, z adenozinom posredovana aktivacija receptorjev A2a, ki so še posebej izraženi v aferentnih arteriolah, sproži vazokonstrikcijo ledvične vaskulature, s čimer lahko vpliva na ledvični pretok krvi in glomerularno filtracijo.185,193. Opozoriti je treba, da je bila ugotovljena vloga purinergičnih receptorjev pri napredovanju kronične ledvične bolezni194.