
Del Ⅱ: Prekomerno izražanje PKD1 povzroča policistično ledvično bolezen
Mar 16, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-pošta:audrey.hu@wecistanche.com
Caroline Thivierge, Almira Kurbegovic, Martin Couillard, Richard Guillaume, Olivier Coté in Marie Trudel
Patogenetski mehanizmi v ozadjuavtosomno dominantno policistična bolezen ledvic(ADPKD) je treba še pojasniti. Čeprav obstajajo dokazi, da PKD1 (policistična bolezen ledvic 1) genska haploinsuficienca in izguba heterozigotnosti lahko povzročita nastanek cist pri miših, paradoksalno visoke ravni PKD1 (policistična bolezen ledvic 1) so odkrili izražanje v ledvicah bolnikov z ADPKD (avtosomno dominantno policistično boleznijo ledvic). Če želite ugotoviti, ali je PKD1 (policistična bolezen ledvic 1) povečanje funkcije je lahko patogenetski proces, PKD1 (policistična bolezen ledvic 1) bakterijski umetni kromosom PKD1 (policistična bolezen ledvic 1)-BAC) je bil spremenjen s homologno rekombinacijo tako, da je ciljal izključno na trajno PKD1 (policistična bolezen ledvic 1) izražajo prednostno kot pri odraslih ledvicah. Ustvarjenih je bilo več transgenih linij, ki so specifično prekomerno izražale PKD1 (policistična bolezen ledvic 1) transgen v ledvicah 2- do 15-se zloži nad PKD1 (policistična bolezen ledvic1) endogene ravni. Vse transgene miši so ponovljivo razvile tubularne in glomerularne ciste ter ledvično insuficienco in umrle zaradi odpovedi ledvic. Ta model dokazuje, da prekomerna ekspresija divjega tipa PKD1 (policistična bolezen ledvic 1) sama zadostuje za sprožitev cistogeneze, ki je podobna človeški ADPKD (avtosomno dominantnopolicistična bolezen ledvic). Naši rezultati so odkrili tudi izrazito povečano ekspresijo c-Myc v ledvicah pri miših iz vseh transgenih linij, kar kaže, da je c-Myc kritičen in vivo spodnji efektor PKD1 (policistična bolezen ledvic 1) molekularna pot. Ta študija ni ustvarila samo neprecenljivega in prvega PKD(policistična bolezen ledvic)model za vrednotenje molekularne patogeneze in terapij, hkrati pa zagotavlja dokaze, da bi lahko bilo povečanje funkcije patogenetski mehanizem pri ADPKB (avtosomno dominantna policistična bolezen ledvic).
Cistanche za zdravljenje bolezni ledvic
KLIKNITE TUKAJ ZA DEL Ⅰ
REZULTATI
Proizvodnja PKD1 (policistična bolezen ledvic 1)-Ac-BAC s homologno rekombinacijo. Če želite ugotoviti, ali je PKD1 (policistična bolezen ledvic 1) samo povečanje funkcije zadostuje za proizvodnjo fenotipa ADPKD (avtosomno dominantna policistična ledvična bolezen), smo najprej izolirali genomski klon, ki vsebuje celotno PKD1 (policistična bolezen ledvic 1) v knjižnici vektorja BAC 129/Sv. To knjižnico smo pregledali s PCR z dvema nizoma primerjev za PKD1 (policistična bolezen ledvic 1), ki je obsegal ekson 1 na 5' koncu in eksone 39 do 40 proti 3' koncu (slika 1). Pozitiven klon BAC za PKD1 (policistična bolezen ledvic 1) je bil identificiran gen, ki je vključeval celotno sosednje telo gena Tsc2. Vložek PKD1 (policistična ledvična bolezen 1) je bil podrobno karakteriziran, da se zagotovi, da se genomska struktura ujema s strukturo endogenega PKD1 (policistična bolezen ledvic1) gen seva miši 129/Sv, iz katerega je bil vložek izpeljan, in iz samooplodnega seva C57BL/6J. Genomski zemljevidi PKD1 (policistična bolezen ledvic 1) lokusu v BAC in v teh samooplodnih sevih z analizo Southern blot, s štirimi prebavami z restrikcijskimi encimi in sedmimi sondami, ki pokrivajo celotno PKD1 (policistična bolezen ledvic 1) gena, videti identična brez dokazov o prerazporeditvah (slika 1). Ta BAC je vseboval -121-kb vložek, vključno s ~37 kb gorvodnega in -39 kb spodnjega zaporedja PKD1 (policistična bolezen ledvic1) gen, določen z elektroforezo in sekvenciranjem.
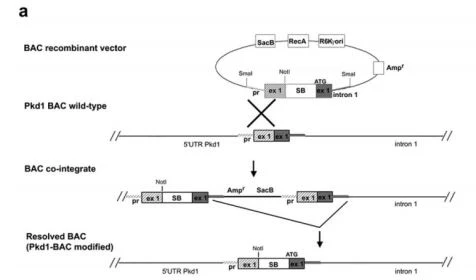
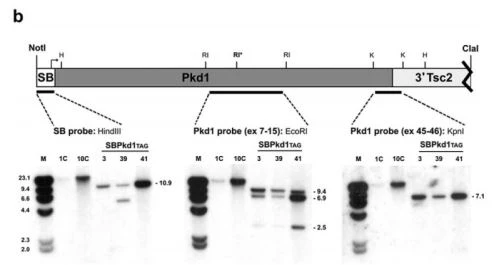
FIG. 2.Proizvodnja konstruktov SBPkdlrAc in transgenih miši. (a) Na mišjem Pkdl-BAC so izvedli zaporedne dogodke homologne rekombinacije, da bi uvedli dve modifikaciji: regulacijske elemente SB, vstavljene neposredno pred iniciacijskim kodonom Pkdl, in tiho točkovno mutacijo EcoRI (RI*), uvedeno v ekson(ex) 10. Rekombinacijski vektor BAC vsebuje izvor replikacije R6Ky, gen, odporen na ampicilin, gen SacB, gen RecA in edinstveno mesto za kloniranje Smal, v katerem so bili klonirani regulatorni elementi "SB" (ali mutacija tihe točke eksona 10). z bočnimi kraki gena Pkd1. Rekombinacijski vektor BAC je bil elektroporiran v celice E, coli (DH10B), ki so vsebovale divji tip Pkdl-BAC, in po selekciji je prišlo do prvega homolognega rekombinacijskega dogodka prek enega od dveh krakov Pkd1, da so nastali kointegrati BAC. Rekombinacijski vektor in podvojene regije Pkdl kointegratov BAC so bile izločene v drugem selekcijskem koraku. Razrešeni Pkdl-BAC se lahko vrnejo v divji tip ali vključujejo predvideno spremembo. Nato se lahko uvede poznejša homologna rekombinacija v novo modificiran BAC.(b)(ienomc DNA iz SBPkd l-etransgene mxce je bil anakZiran s Sou thern blot.AVicToiD1ecLon lineariziranih fragmentov je povzročil vstavitev transgena v glavo na glavo. orientacija -to-rep in/ali rep-to-rep. 5'-konec smo analizirali z razgradnjo genomske DNA s HindIII in hibridizirali s specifično transgensko sondo SB (leva plošča). Vse tri transgene mišje linije so ustvarile pričakovanih 10 .9-kb pas za vstavljanje od glave do repa; dodatni pas, opažen v vrstici 39, najverjetneje predstavlja spojni fragment med SB in mišjim genomom. Notranjo celovitost transgena smo spremljali z več prebavami restrikcijskih encimov in prikazan je en reprezentativni madež genomske DNA, prebavljene z EcoRI in hibridizirane s sondo Pkdl (ekson 7-15) (srednja plošča).
Ta SBPKD1 (policistična bolezen ledvic 1)-BAC klon je bil spremenjen z dvema zaporednima dogodkoma homologne rekombinacije v E. coli. Gen PKD1 (policistična ledvična bolezen 1) je bil označen v eksonu 10 z zamenjavo nukleotida (G z A), da se ustvari novo mesto EcoRI na položaju 2355 na karti cDNA. Ta tiha točkovna mutacija je nastala za razlikovanje PKD1 (policistična bolezen ledvic 1) gen in prepis BAC iz tistega endogenega izvora. Poleg tega smo zamenjali 5'regulativne elemente PKD1 (policistična bolezen ledvic 1)-BAC z izkoriščanjem predhodno identificiranih "SB" ledvičnih epitelijskih specifičnih elementov iz konstrukta-trans-gena SBM (povezanega s c-Myc) ali SBF, povezanega s c-fos), da omeji izražanje na ledvice (36, 38) (slika 2a).
Ta novi SBPkdlrAG-BAC je bil prebavljen z NotL, edinstvenim mestom, ki se nahaja tik pred elementi SB, in ClaI v telesu gena Tsc2, pri čemer so bili okrnjeni regulatorni elementi Tsc2 in 5'polovica telesa gena, da se zagotovi pomanjkanje T'sc2 eksogeno izražanje v vseh tkivih in za odstranitev prokariontskih vektorskih sekvenc BAC (sl. 1 in 2). Ta 70-kb NotI-ClaI lineariziran fragment je bil izoliran, prečiščen. in kvantificirano za mikroinjiciranje oocitov (36).
CISTANCHE BENEFIT: ZDRAVLJENJE LEDVIČNIH BOLEZNI
Proizvodnja in analiza transgenih miši SBPkdl-ac. Štirje transgeni ustanovitelji, ki so nosili več kopij transgena SBPkdlrAc, so dosledno razvijali PKD. Od štirih SBPKD1 (policistična bolezen ledvic 1)Miši ustanoviteljice RAC, določene s Southern analizo, trije SBPKD1 (policistična bolezen ledvic 1Transgene linije TAG so bile vzpostavljene z dvema do devetimi kopijami transgena (slika 2b). Karakterizacijo transgenske celovitosti v teh linijah smo spremljali s 5', internimi in 3' sondami, kot je prikazano z reprezentativnimi primeri na sliki 2b. Transgene linije so s sondo 5'"SB" razkrile pas pri 10,9 kb, ki je skladen s SBPkdlrAc trans-gen, ki je integriran v orientaciji od glave do repa in razkrit s 3' sondo pas 71-kb (slika 2b). Poleg tega je notranja sonda zaznala pas 9.4-kb endogenega PKD1 (policistična ledvična bolezen 1) ter pasova 69-kb in 2.5-kb transgena zaradi vstavitvenega mesta EcoRI v eksonu 10 (slika 2b). Te miši so vsebovale popolne kopije transgena na podlagi analize prekrivajoče se genomske strukture.
PKD1 (policistična bolezen ledvic 1) pridobitev funkcije pri odraslih transgenih miših SBPkdl-Ac. Izražanje SBPkdl-AG. transgen in PKD1 (policistična bolezen ledvic 1) gen je bil raziskan v različnih organih. Kvantifikacija ravni transkripta iz transgenskega in/ali endogenega gena je bila izvedena z analizo Northern blot (slika 3a). Kot je bilo pričakovano, so bili transgeni in endogeni genski transkripti podobne dolžine (14, 2 kb). Na podlagi kontrolne ekspresije GAPDH so imele ledvice vseh mišjih linij SBPkd 1 A dosledno povečano ekspresijo transkripta v primerjavi z normalnim PKD1 (policistična bolezen ledvic 1) v ledvicah odraslih (n=3) podobne starosti. Ledvična transgena in endogena ekspresija za različne transgene linije je pokazala razpon od 2- do 15--krat nad kontrolnim ledvičnim endogenim PKD1(policistična ledvična bolezen 1)ravni (slika 3a). Zlasti transgena linija 39(n=4) je pokazala višji PKD1 (policistična bolezen ledvic 1) ravni kot vrstici 3 (n=3) in 41(n=4). Poleg tega PKD1 (policistična bolezen ledvic 1) ravni izražanja, izmerjene z analizo Northern blot, so bile v korelaciji s tistimi, pridobljenimi s PCR v realnem času z uporabo primerjev v eksonih 1 in 2 (slika 3b).
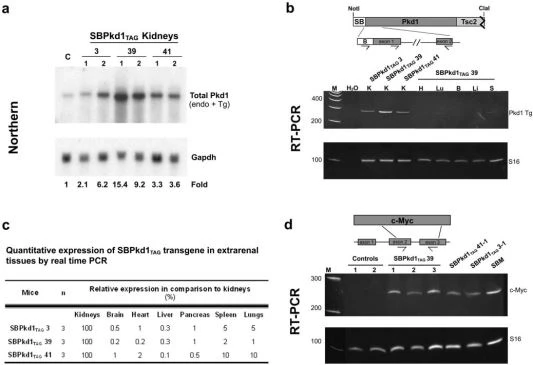
SL.3.Analiza ledvične ekspresije miši SBPkdlrA. (a) Ekspresijska analiza Pkd1 endogenih (endo) in SBPkdlrA transgenskih (Tg) transkriptov v ledvicah iz treh transgenih linij z Northern blottingom. Dva vzorca iz vsake transgene linije, 3, 39 in 41, smo primerjali z endogenim ledvičnim transkriptom Pkdl normalnih kontrolnih miši, ki se ujemajo s starostjo, iz istega genetskega ozadja (C5BI 6I ×CBA/DE, vzorci ledvične RNA so bili pridobljeni iz transgenih miši pred končni stadij ledvične bolezni. Transkripta endo in Tg sta dolga -14.2 kb. Sistematično čezmerno izražanje transkriptov so opazili v ledvicah vseh transgenih miši glede na netransgenske kontrole. GAPDH je bil uporabljen kot notranja kontrola Kvantifikacija ledvične ekspresije pri teh transgenih miših je bila v razponu od 2- do 15--kratnika glede na Pkd1endogene ravni kontrolnih miši, ki so bile poljubno nastavljene na 1. (b) Shematski prikaz transgena SBPkdl- in primerji so bili uporabljen za pomnoževanje celotnega Pkdl, vključno z endogenim in transgenom (ekson 1 in ekson 2) in samo transgenom Pkd1 (B. ekson 2) s PCR v realnem času in semikvantitativno RT-PCR, je bila analiza RT-PCR izražanja transgena SBPkdlAc kvantificirana v ledvični in dodatno ledvična tkiva. Prikazana je reprezentativna semikvantitativna ocena transgena SBPkdl.Ac (Tg), ki vključuje vzorec ledvičnega tkiva (K) iz ene miši vseh treh transgenih linij (3. 39 in 41) in ekstrarenalnih tkiv. H, srce; Lu, pljuča; B. možgani; Li, jetra; in S. vranico iz miši linije 39. Ekspresijo transgena je zlahka zaznati v ledvicah vseh transgenih miši, medtem ko je nizka do nezaznavna v ekstrarenalnih tkivih. Ekspresija iz transgena SBPkd1rAc je proizvedla specifičen pomnožek 307-bp, medtem ko je notranja kontrola S16 ustvarila pomnožek 102-bp. M,100-bp marker; H, O, negativna kontrola za PCR pomnoževanje. (c) Analiza ekspresije PCR v realnem času SBPkdlr. Transgen je bil določen iz več neodvisnih miši. Transgen SBPkdl.Ac iz treh transgenih mišjih linij 3 (n=5), 39(n =7) in 41 (n=5) je pokazal, da imata liniji 39 in 41 največ ravni ledvične ekspresije. Izražanje transgena SBPkdlrAc v ekstrarenalnih tkivih miši (n=3) treh transgenih linij je bilo ocenjeno s PCR v realnem času. V primerjavi z ledvicami vsake transgene linije (100 odstotkov) je analiza zunajledvičnih tkiv pokazala, da so bile ravni izražanja transgena dosledno nižje za 10- do 1,000-krat v možganih, srcu, jetrih, trebušni slinavki , vranica in pljuča. (d) Ekspresija endogenega gena c-mc v ledvicah SBPkdl.Ac s polkvantitativno RT-PCR. Shematska ilustracija prikazuje primerje, uporabljene za pomnoževanje c-Myc. Kot je bilo pričakovano, je izražanje c-Myc minimalno pri odraslih netransgenih ledvicah (kontrole). Nasprotno pa je povečano izražanje c-Mye zaznano v vseh odraslih ledvicah SBPkdlrAc treh linij, kot so opazili pri odraslih transgenih SBM ledvicah, uporabljenih kot pozitivno kontrolo. Pomnožek c-Myc je bil 250 bp; pomnožek S16, notranje kontrole, je bil 102 bp.M,100-bp marker.
Konkretno, kvantifikacija ravni transgenske ekspresije je bila izvedena s PCR v realnem času in semikvantitativno RT-PCR v treh transgenih linijah v odrasli dobi z uporabo primerjev v 5'neprevedeni regiji (B, -globinski promotor) in v eksonu 2 PKD1 (policistična bolezen ledvic 1)(Slika 3b). SBPKD1 (policistična bolezen ledvic 1) Ekspresijo RAC pri transgenih miših smo primerjali z genskim produktom ribosomskega proteina S16 kot internim standardom. Pogoji, uporabljeni za polkvantitativno pomnoževanje RT-PCR, so bili znotraj linearnega območja. Ekspresija transgena s PCR v realnem času in polkvantitativno RT-PCR je dosledno in specifično pokazala največjo ekspresijo v ledvicah vseh transgenih linij glede na druge organe (sl. 3b in c). Stopnje ledvične ekspresije za posamezni vzorec so bile ponovljive s katero koli od uporabljenih tehnik odkrivanja. Najvišje ravni PKD1 (policistična bolezen ledvic 1) transgensko ledvično ekspresijo smo izmerili za liniji 39 in 41. Da bi spremljali, ali je povečana ekspresija PKD1 (policistična ledvična bolezen 1) posledica transgenskega ali endogenega gena, smo isto skupino miši iz treh transgenih linij primerjali za ledvično PKD1 ( policistična ledvična bolezen 1) transgensko izražanje in za ledvično PKD1 (policistična ledvična bolezen 1) celotno (transgeno in endogeno) izražanje s PCR v realnem času. Zanimivo. vrstici 39 in 41 glede na vrstico 3 sta pokazali, da je povečan PKD1 (policistična bolezen ledvic 1)transgenska ledvična ekspresija je bila podobna ali višja od celotne ledvične ekspresije PKD1 (policistična ledvična bolezen 1), kar kaže na transgen kot posebej odgovornega za to inducirano ekspresijo. V različnih organih (vključno s srcem, pljuči, možgani, jetri, trebušno slinavko in vranico) se SBPKD1 (policistična bolezen ledvic 1) RAC; transgen je pokazal zelo šibko izražanje, občasno odkrito v vranici in pljučih, z malo do nezaznavnim izražanjem v drugih organih (slika 3b). Kvantifikacija s PCR v realnem času je pokazala 10-- do 1,{5}}-krat nižjo stopnjo izražanja transgena v zunajledvičnih tkivih glede na izražanje v ledvicah (slika 3c). "SB" regulatorni elementi transgena SBPkdlrAc so dali prednostno ledvično izražanje; ta posebna porazdelitev organov je bila določena tudi pri uporabi v transgenih, povezanih s c-Myc (SBM) in c-fos (SBF) (36, 38). c-Mye, nadaljnji efektor PKD1 (policistična bolezen ledvic 1) signalne poti v SBPkdlrAc: miši. Da bi pridobili vpogled v intracelularni patogenetski mehanizem transgenih miši SBPkdlrAc, smo nato poskušali spremljati raven ledvične ekspresije c-Myc na podlagi našega prejšnjega opazovanja deregulacije c-Myc v človeških ADPKD (avtosomno dominantna policistična bolezen ledvic) ledvicah (22). Analiza ledvic je bila izvedena iz vseh treh transgenih linij 3(n=4).39(n=7) in 41 (n =4) ter kontrolnih (n {{9) }}). Kot je prikazano na sliki 3d, obstaja znatno izražanje endogenega c-Mye, induciranega pri miših SBPkdlrAa v primerjavi s kontrolnimi mišmi podobne starosti. Zanimivo je, da je raven izražanja c-Myc v nekaterih ledvicah SBPkdlrAG, zlasti v liniji 39, dosegla ravni, primerljive s tistimi, opaženimi v modelu transgene miši PKD SBM, proizvedenega z ledvično ekspresijo c-Myc.
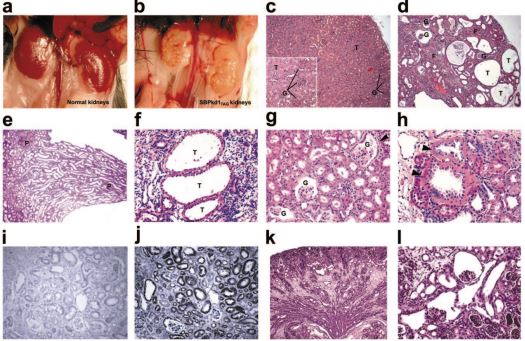
Ledvične anomalije pri SBPKD1 (policistična bolezen ledvic 1) ARC mice similar to PKD. To characterize the phenotype caused by the transgene expression, gross and histologic examinations were undertaken on transgenic kidneys. Adult kidneys from all transgenic lines were affected bilaterally. Kidneys contained numerous cortical cysts that varied from microscopic to macroscopic in size (Fig.4a and b). SBPkdlrAc. kidneys were pale, a typical finding in PKD. On histologic examination, all transgenic founder mice and progenies (n = 25;n>6 za vsako črto) razvilo več tubularnih (T) in glomerularnih cist (G) (sl. 4d, f in g). Ciste so opazili v tubulih iz kortikalnih in medularnih regij ter zbiralnih tubulih iz papile (sliki 4d in e). Transgene miši so pokazale tubularno epitelno hiperplazijo (puščica), ki je vključevala cistične in ne-cistične tubule ter pogosto hipertrofijo (sl. 4g in h). vendar se je resnost med posameznimi mišmi razlikovala. Intersticijska fibroza (F). Pogosto so opazili perivaskularne limfoidne infiltrate in beljakovinske odlitke (P) (sliki 4d in e)
Slika 4
Za natančnejšo opredelitev mesta lokalizacije povečane PKD1 (policistična bolezen ledvic 1)ekspresijo v ledvicah, smo izvedli in situ hibridizacijo z eksonsko 36-45 sondo, ki smo jo predhodno uporabili (16). Hibridizacijski signal je bil specifično lokaliziran na epitelijske celice, ki obdajajo ciste in hiperplastične tubule ter glomerularne ciste. Poleg tega je bilo nekaj signala opaziti nad epitelijem necističnih ali rahlo razširjenih tubulov, kar je verjetno identificiralo tubule, ki so vnaprej določeni za prihodnje cistične spremembe (sliki 4i in j). Ledvična histološka analiza je bila izvedena tudi na transgenih miših ob rojstvu (n=8), postnatalni dan 10(P10)(n=3),P20(n=5),P35(n{ {10}}) in P45(n= 3) v primerjavi z negativnimi sorodniki iz legla iste starostne skupine (n =2 do 4). Zanimivo je, da so vse novorojene transgene miši pokazale tubulno in glomerularno dilatacijo glede na kontrolni negativni sorodniki iz legla (sliki 4k in 1), kar kaže, da so se ledvične anomalije začele v maternici, kot so opazili pri miših SBM in pri ADPKD (avtosomno dominantna policistična bolezen ledvic) bolniki. Tubularna in glomerularna dilatacija sta se s postopno starostjo povečevala po velikosti in številu. Do P35 so transgene miši pokazale hujšo hiperplazijo in znake glomeruloskleroze. Spremenjene fiziološke funkcije ledvic pri miših SBPkdlrsc. Fiziološke funkcije ledvic vseh transgenih miši so pokazale značilnosti, podobne PKD, medtem ko se pri netransgenih sorodnikih iz legla bolezen nikoli ni razvila. V nekaj mesecih po rojstvu se je pri prizadetih živalih razvila kronična ledvična insuficienca. Pri teh živalih so spremljali ledvične funkcionalne parametre z merjenjem ravni v serumu in urinu. dušik sečnine v krvi (BUN) in kreatinin, osmolalnost urina, beljakovine v urinu in izločanje ionov (tabela 1). Vse miši iz treh linij so v primerjavi s kontrolami pokazale napake koncentracije, kar je pogosta ugotovitev pri ADPKD (avtosomno dominantna policistična bolezen ledvic). in posledično pokazala zmanjšano količino urina BUN. koncentracije kreatinina, beljakovin in železa. Transgeni SBPKD1 (policistična bolezen ledvic 1)rAc.ustanovitelje in potomce (n=6) iz vsake linije smo kvalitativno spremljali glede proteinurije na vzorcih urina s SDS-PAGE (slika 5). Miši, starejše od 2 mesecev, so pokazale neselektivno proteinurijo, ki je s starostjo napredovala. Poleg tega so se zvišale ravni serumskega BUN in serumskega kreatinina, kar je razkrilo ledvično insuficienco (tabela 2). Ker kronična ledvična insuficienca običajno vodi do sprememb v hematoloških parametrih, so bili ti pregledani pri transgenih miših SBPkdlAc, starih od 3 do 14 mesecev (tabela 2). Te transgene miši so bile anemične, kar dokazuje znatno zmanjšano število rdečih krvnih celic, pri čemer sta hemoglobin in hematokrit dosegla polovico normalnih ravni. Drugi parametri rdečih krvnih celic, kot je odstotek retikulocitov, niso bili prizadeti, kot je bilo pričakovano, če jih je povzročila ledvična okvara. Te živali so dosledno poginile zaradi odpovedi ledvic pri -5.9 ± 2,8 mesecih starosti (n {{12} }) za transgensko linijo 39 in pri poznejših starostih,-14.6± 3,1 meseca (n= 20) in-11.7 ±6,5 meseca (n=7) , za vrstici 3 in 41, v tem zaporedju.
UČINKI CISTANCHE: ZDRAVLJENJE LEDVIČNIH BOLEZNI
DISKUSIJA
Tukaj poročamo o izolaciji in karakterizaciji mišjega PKD1 (policistična bolezen ledvic 1)-BAC. Ta PKD1 (policistična bolezen ledvic 1) gen je bil označen in regulatorni elementi so bili zamenjani za ciljno izražanje specifično na ledvicah z dvema zaporednima dogodkoma homologne rekombinacije. Transgene miši, pridobljene s tem novim genom SBPkdlrAG, so pokazale 2-- do 15--kratno povečanje izražanja PKD1 (policistična ledvična bolezen 1) in ponovljivo razvile zgodnje ledvične morfološke spremembe, značilne za PKD. Ledvična insuficienca je očitna v srednjih letih in miši prezgodaj umrejo zaradi ledvične odpovedi. Naši rezultati tudi kažejo, da je mehanizem prekomerne ekspresije PKD1 (policistična ledvična bolezen 1), odgovoren za ta fenotip, posredovan s signalno aktivacijo c-Myc in vivo. Ta študija dokazuje, da je povečanje delovanja ledvic pri mišji PKD1 (policistična ledvična bolezen 1) zadostno za nastanek ledvičnega fenotipa PKD.
Ker je mišji PKD1 (policistična bolezen ledvic 1) gen ni podvojen, kot je pri ljudeh (27), smo neposredno identificirali in izolirali klon BAC, ki je vseboval celoten PKD1 (policistična bolezen ledvic 1) gen. Popolna karakterizacija mišjega PKD1 129/Sv (policistična bolezen ledvic 1)-BAC. posredna primerjava z dvema drugima samooplodnima linijama miši je potrdila celovitost lokusa PKD1 (policistična bolezen ledvic 1). PKD1 (policistična bolezen ledvic 1)-BACinsert je vseboval -37 do 39 kb zaporedij navzgor in navzdol od gena PKD1 (policistična ledvična bolezen 1). Naša analiza je pokazala, da je PKD1 (policistična bolezen ledvic 1) gen v tem BAC je bil verodostojen lokus mišjega divjega tipa, ki bi lahko služil za nadaljnje študije.
Čeprav obstajajo trdni dokazi, da nastanek cist pri ADPKB (avtosomno dominantna policistična bolezen ledvic) je lahko posledica izgube heterozigotnosti po somatski inaktivaciji normalne PKD1 (policistična bolezen ledvic 1) alela (3.21.32), obstajajo tudi sugestivni dokazi za trajno ali celo povečano izražanje policistina-1 v cističnem tubulnem epiteliju (22.29). Slednja ugotovitev postavlja vprašanje, ali je čezmerna ekspresija PKD1 (policistična ledvična bolezen 1) sama po sebi zadosten neposredni vzrok za cistogenezo. Pri transgenih miših, ki nosijo človeški PKD1 (policistična bolezen ledvic 1), TSC2. RAB26. NTHL1 in SLC9A3R2 genov, je le manjšina miši razvila ciste in nobena ni imela zaznavne ekspresije transgena v odrasli dobi kljub 30 kopijam transgena (31). Pri teh transgenih miših. težko je bilo ugotoviti jasno vlogo čezmerne ekspresije PKD1 (policistična ledvična bolezen 1) pri cistogenezi. Naš model se razlikuje, saj je bilo v transgene miši integriranih dve do devet kopij divjega tipa PKD1 (policistične bolezni ledvic 1), brez sosednjih genov. Ker ima gen PKD1 (policistična ledvična bolezen 1) bistvene funkcije v različnih organih ali tkivih, kot je opisano za številne miši z ablacijo gena PKD1 (policistična ledvična bolezen 1), sistemska čezmerna ekspresija PKD1 (policistična bolezen ledvic 1) lahko povzročijo dodatne moteče učinke. Posledično smo obravnavali vlogo PKD1 (policistična bolezen ledvic 1) pridobitev funkcije z uporabo pristopa, ki cilja PKD1 (policistična ledvična bolezen 1) posebej na ledvice. S homologno rekombinacijo smo najprej zamenjali PKD1 (policistična ledvična bolezen 1) gorvodno regulativno regijo z "SB" ledvično omejenimi regulativnimi elementi, s čimer smo preprečili zmanjšano izražanje genov, običajno opaženo za PKD1 (policistična bolezen ledvic 1) v odrasli dobi kot tudi potencialna regulacija sekundarne povratne zanke (36,38). Drugič, označili smo mišji PKD1 (policistična bolezen ledvic 1) transgen (Pkdlr) s tiho točkovno mutacijo v eksonu 10, vendar ni vstavil oznake epitopa, da bi zagotovil, da bo proizveden popolnoma funkcionalen protein "divjega tipa" z ohranjeno strukturo in celovitostjo. Iz tega modificiranega BAC je bil fragment SBPkdlrAG očiščen stran od gena Tsc2 in vektorja BAC, da se prepreči interferenca gena Tsc2, ki lahko povzroči tudi cistični fenotip (8.20.28). kot tudi za izogibanje zaviralnemu učinku prokariontskih zaporedij (5).
Štiri različne miši ustanoviteljice SBPkdlrActransgene in tri neodvisne linije so bile proizvedene s specifičnim ledvičnim PKD1 (policistična bolezen ledvic 1)-okrepljeno izražanje. Še posebej osupljiva je popolna penetracija fenotipa pri teh transgenih miših. SBPKD1 (policistična bolezen ledvic 1) Ustanovitelj rAc in mišje linije so si delile več fiziopatoloških značilnosti, skupnih z ADPKD (avtosomno prevladujoča policistična bolezen ledvic). Ti vključujejo razvoj cist v skorji, meduli in glomerulih skupaj z epitelno hiperplazijo, intersticijsko fibrozo in žariščnim intersticijskim vnetjem.
Ker je bil fenotip PKD dosledno opažen pri vseh različnih transgenih začetnih miših in je integracija transgena v mišji genom naključen pojav, fenotip ne more biti posledica učinka kromosomskega položaja, ampak samo povečanega PKD1 (policistična bolezen ledvic 1) izraz. Dokazano je bilo, da je izražanje transgena PKD1 (policistična bolezen ledvic 1) v vseh linijah omejeno na ledvice. kot je bilo prej opaženo za druge transgene, ki jih regulirajo elementi "SB" (36,38). Poleg tega je to povečano izražanje PKD1 (policistične bolezni ledvic 1) povzročil transgen in ne posredni endogeni PKD1 (policistična bolezen ledvic 1) aktiviranje. Zato naši rezultati zagotavljajo jasne dokaze, da lahko pridobitev funkcije divjega tipa funkcionalnega PKD1 (policistična ledvična bolezen 1) povzroči več ledvičnih cist. Pomembno je, da te prakse SBPKD1 (policistična ledvična bolezen 1) predstavljajo prvi mišji model, ustvarjen s samo čezmerno ekspresijo mišjega ortologa človeškega PKD1 (policistična bolezen ledvic 1) gen.
Miši SBPkdl-Ac dokazujejo, da PKD1 (policistična bolezen ledvic 1Prekomerna ekspresija je primarni patogenetski mehanizem ledvične cistogeneze. Pomembno je, da se zdi, da so najvišje ravni izražanja transgena v ledvicah povezane z napredovanjem in resnostjo fenotipa. Ugotovili smo tudi, da je prekomerna ekspresija PKD1 (policistična ledvična bolezen 1) pri razvoju SBPKD1 (policistična bolezen ledvic 1Fenotip )-Ac verjetno signalizira aktivacijo c-Myc in vivo. Možno je, da bi bila ta aktivacija lahko celo neposredna prek policistinskega-1 C-terminalnega repa, ki je podvržen proteolitičnemu cepljenju in jedrski translokaciji (7). Ker je bilo dokazano, da povečana ledvična ekspresija c-Myc pri odraslih miših inducira PKD, bi bilo zelo dosledno podpirati c-Myc kot glavnega spodnjega efektorja PKD1 (policistična bolezen ledvic 1) signalne poti. Ta rezultat je bil tudi v korelaciji z našimi prejšnjimi ugotovitvami o povečanem izražanju c-Myc v ledvicah vseh analiziranih človeških ADPKD (avtosomno dominantna policistična bolezen ledvic) (22). Skupaj ti rezultati kažejo, da je c-Mye glavni mediator PKD1 (policistična bolezen ledvic 1) cistogeneza.
Naši rezultati iz PKD1 (policistična bolezen ledvic 1)model povečanja delovanja, skupaj s haploinsuficienco in izgubo funkcije mišjega PKD1 (policistična ledvična bolezen 1), kaže, da kateri koli PKD1 (policistična bolezen ledvic 1) disregulacija lahko povzroči cistogenezo (2.19.23-26.31.40). Hudo neravnovesje PKD1 (policistična ledvična bolezen 1) pri miših, ki ga povzroča PKD1 (policistična bolezen ledvic 1) ablacija ali transgena prekomerna ekspresija je povzročila zgodnji pojav in hitro napredovanje ledvičnih cist ter prizadela velik delež tubulov. Nasprotno pa blažji PKD1 (policistična bolezen ledvic 1) neravnovesje, kot je haploinsuficienca, je povzročilo počasnejše napredovanje PKD z več žariščnimi cistami. Navidezen paradoksalen razvoj podobnega fenotipa s pomočjo nasprotne disregulacije policistina-1 je mogoče razložiti s skupnim rezultatom, in sicer z relativnim neravnovesjem koncentracije beljakovin, ki bi lahko spremenilo tvorbo ali delovanje aktivnega policistinskega multiproteinskega kompleksa. Skupaj naši rezultati in rezultati drugih raziskovalcev trdijo, da je mehanizem nastanka cist pri ADPKD (avtosomno dominantna policistična bolezen ledvic) verjetno nastane zaradi treh patogenetskih mehanizmov: pridobitve funkcije, izgube funkcije in učinkov odmerjanja genov.
Roman SBPkdlrAc; miši predstavljajo močan model ledvične cistogeneze, ki lahko zagotovi pomembne vpoglede v patofiziologijo PKD, PKD1 (policistična bolezen ledvic 1) poti prenosa signala in medsebojni partnerji. Študija tega modela lahko vodi tudi do razvoja novih terapevtskih strategij za ponovno vzpostavitev normalnega ravnovesja beljakovin znotraj PKD1 (policistična bolezen ledvic 1) multimerni kompleks.
Cistanche zdravi ledvične bolezni in izboljšuje delovanje ledvic
REFERENCE
1. Blouin, MJ, H.Beachemin, A Wright, M. E. De Paepe, M. Surrette, AM. Beau. B. Nakamoto, CN. Ou, G. Stamatoyannopoulos in M. Trudel. 2000. Genetska korekcija srpastocelične bolezni: vpogled z uporabo transgenih modelov miši Nat. Med.17-182.
2 Boulter, C, S. Mulroy, S. Webb, S. Fleming, K. Brindle in R. Sandford. 2001. Srčno-žilni, skeletni. in okvare ledvic pri miših s ciljno motnjo PKD1 (policistična bolezen ledvic 1)gen. Proc. Natl.Acad. Sci. ZDA 9812174-12179.
3. Brasier, JL in EPHenske.1997. Izgubapolicistična bolezen ledvic(PKD1)regija kromosoma 1φp13 v celici ledvične ciste podpira model izgube funkcije za patogenezo ciste. J. Clin. Investig.99:194-199.
4. Burn, TC, TD Connars, W. R. Dackowski, LR. Petry, TJVan Raay, JMMilhalland, M. Venet, G. Milker, R. ML Hakim, G. ML Landes, KW Klinger, F. Qiam, LF. Onuchic, T. Watnick GGGermino in N. A Doggett. 1995. Analiza genomskega zaporedja zaavtosomno dominantna policistična bolezen ledvicgen napoveduje prisotnost ponovitve, bogate z levcinom. Hum Mol, Genet.4-575-58.
5. Chada, K, J. Magram, K. Raphael, G. Radice, E. Lacy in F. Costantini. 1985. Specifična ekspresija tujega -globinskega gena v eritroidni celici transgenih miši Nature 337-380.
6. Chauvet, V, F.Qian, N. Bought, Y.Cai B.Phakdeekitacharoen, LF.Onuchi, T. Attie-Bitach, L. Guicharnaud, O.Devuryst, GG Germino in M.-C. Gubler.2002. Izražanje transkriptov in proteinov PKDI in PKD2 v človeškem zarodku in med normalnim razvojem ledvic. Am. J.Pathol. 160973-983.
7.Chaurvet,V, X Tian, H.Husson, DH Grimm, T.Wang T.Hiesberger, P. Igarashi, AMBennett, O.braghimov-Beskrovnaya, S.Somlo in MJ Caplan. 2004 Mehanski dražljaji povzročijo cepitev in jedro translokacija pobeystin-1 C terminusa.J. Cin.Investig 114:1433-1443.
8. Cheadle, JP, MPReeve, JR Sampson in DJ Kwiatkowski 2000. Molekularni genetski napredek pri tuberozni sklerozi. Hum. Genet10797-114.
9. Konzorcij, EPKD1993. Identifikacija in karakterizacija gena za tuberozno sklerozo na kromosomu 16.Cell75:1305-1315.
10. Konzorcij, EPKD1994.Thepolicistična bolezen ledvic 1gen kodira vse prepisljive znotraj podvojene regije na kromosomu 16 Celica 7781-894.
11. Konzorcij, L PK D 1995.Policistična bolezen ledvic: celotna struktura PKD1 (policistična bolezen ledvic1) gen in njegov protein. Ce 81:289-298
12. Couillard, M.,R Guilkume, N Tanj, V.DAgati in M. Trudel.2002. c-Myc-inducirana apoptoza vpolicistična bolezen ledvicje neodvisen od interakcije FasL/Fas. Cancer Res. 62:2210-2214.
13. De Paepe, M Land M Trudy 1904, Model človeške srpastocelične glomerulopatije. Kidney Int. 46:1337-1345.
14. GengL,Y, Segal B.PekseL N.Den Y. Pei, F.Carone, H G. Rennke, AM Glücksman-Kuis, MCSchneider, M Ericsson, STReeders in J.Zhou. 1996.Identifikacija in lokalizacija poliestra, PKD1 (policistična bolezen ledvic 1) genski produkt. J. Clin. Raziskati. 98-2674-2682