
Prospektivna konsolidacija spomina, ki je odvisna od spanja, je s staranjem oslabljena
Mar 18, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Povzetek
Cilji študije: Obstoječa literatura kaže, da je odvisno od spanjaspominkonsolidacija je pri starejših odraslih oslabljena, vendar je lahko ohranjena za osebno pomembne informacije. Prospektivnospomin(PM) vključuje zapomnitev za pravočasno izvršitev prihodnjih namenov in ima vedenjski pomen. Ker prejšnje delo kaže, da je spanje N3 pomembno za PM pri mladih odraslih, smo raziskali, ali bi se vloga spanja N3 pri konsolidaciji PM ohranila pri starejših odraslih. Metode: Devetinštirideset mladih odraslih (povprečna starost ± SD: 21,8 ± 1,61 leta) in 49 zdravih starejših odraslih (povprečna starost ± SD: 65,7 ± 6,30 let) je bilo randomiziranih v skupine spanja in budnosti. Po nalogi semantične kategorizacije so udeleženci kodirali namere, ki so vsebovale štiri povezane in štiri nepovezane pare iztočnic in dejanj. Naročeno jim je bilo, naj se spomnijo, da morajo ta dejanja izvesti kot odziv na napotke, predstavljene med drugo semantično kategorizacijo 12 ur pozneje, ki je vključevala bodisi dnevno budnost (09:00 zjutraj–21:{{17} } popoldne) ali spanje čez noč s polisomnografijo (21:00 popoldne–09:00 zjutraj). Rezultati: Interakcija pomembno stanje × starostna skupina × sorodnost je pokazala, da se koristi spanja pri namenih PM razlikujejo glede na starostno skupino in sorodstvo (p=0,01). Za sorodne namene je spanje v primerjavi z budnostjo koristilo uspešnosti mladih odraslih (p < 0,001),="" ne="" pa="" tudi="" starejših="" (p="0,30)." za="" nepovezane="" namene="" spanje="" ni="" izboljšalo="" pm="" za="" nobeno="" starostno="" skupino.="" medtem="" ko="" je="" bil="" n3="" po="" kodiranju="" pomembno="" povezan="" z="" izvajanjem="" sorodnih="" namenov="" pri="" mladih="" odraslih="" (r="0.43," p="0.02)," tega="" razmerja="" niso="" našli="" pri="" starejših="" odraslih="" (r="" {{34}="" }="" −0,07,="" p="0,763)." sklepi:="" s="" starostjo="" povezana="" okvara="" konsolidacije="" spomina,="" odvisne="" od="" spanja,="" sega="" do="" pm.="" naše="" ugotovitve="" dopolnjujejo="" obstoječe="" delo,="" ki="" kaže,="" da="" je="" povezava="" med="" spanjem="" in="" spominom="" v="" starejši="" odrasli="" dobi="" funkcionalno="">
Ključne besede:spomin; konsolidacija; počasen spanec; staranje
Ruth LF Leong, June C. Lo in Michael WL Chee*,
1 Center za spanje in kognicijo, program človeškega potenciala, Yong Loo Lin School of Medicine, Nacionalna univerza v Singapurju, Singapur
Uvod Medtem ko spanje nedvoumno koristi konsolidaciji deklarativnega [1–3] in proceduralnegaspomin[4–6] pri mladih odraslih je vse več študij začelo dokazovati, da je pri starejših ta učinek spanja znatno zmanjšan ali ga sploh ni [7–9]. Vendar se to lahko razlikuje glede na naravo memorandumov. Na primer, odvisno od spanjaspominkonsolidacijo za postopkovnespomin[10–12] se zdi razmeroma ohranjen v primerjavi z deklarativnimspominki kaže največjo starostno prizadetost [7]. Zanimivo je, da se deklarativna konsolidacija spomina lahko ohrani, če starejši odrasli dojemajo študijsko gradivo kot privlačno in osebno pomembno [13].
Na primer, medtem ko za besedne pare [14–16] niso ugotovili izboljšav spanja [14–16], je ena študija pokazala, da je spanje v primerjavi z budnostjo koristilospominza kratke zgodbe in osebne dogodke (npr. prvi pogovor tistega jutra) pri starejših odraslih, čeprav v manjši meri kot pri mladih odraslih [17].

Cistanche lahko izboljša spomin
To se lahko zgodi, ker pomembnost naredi spomine bolj izrazite, izboljša sinaptično razmerje med signalom in šumom, tako da se te predstavitve prednostno ponovno aktivirajo in okrepijo med spanjem [18–20]. Na primer, pri mladih odraslih je bilo ugotovljeno, da so pridobitve, odvisne od spanja, večje pri gradivu, ki bo pomembno v prihodnosti, kot so besede [21] in spretnosti [22], za katere so udeleženci pričakovali nagrado, pa tudi pri predmetih, za katere so pričakovali prihodnji test [23].
S staranjem, ko so možgani podvrženi atrofiji [14] in spomin upada, lahko postane korist spanca za spomin bolj odvisna od ustreznosti in pomembnosti memorandumov. Vendar pa je malo študij uporabilo gradivo, ki vključuje prihodnji pomen za razlikovanje učinkov spanja pri mlajših in starejših udeležencih. Tu smo raziskali s starostjo povezane razlike v konsolidaciji prospektivnega spomina (PM), vrste spomina, ki vključuje dejanja kodiranja, ki jih je treba pridobiti ob poznejšem pojavu določenega znaka, na primer posredovanje sporočila kolegu ko pridejo na delo [24, 25].
Da bi to preizkusili v laboratoriju, je prospektivna spominska naloga, pri kateri se od udeležencev zahteva, da izvedejo dejanje kot odgovor na znak, običajno vdelana v tekočo nalogo (npr. naloga semantične kategorizacije). Uspešno prospektivno pomnjenje vključuje pravočasno priklic vsebine namere (retrospektivna komponenta) kot odgovor na pravi dogodek (prospektivna komponenta). Prospektivne okvare spomina predstavljajo 50–80 odstotkov vseh vsakodnevnih težav s spominom [26], kar poudarja njegov funkcionalni pomen. Nedavni dokazi prav tako kažejo, da so lahko spomini z bogatejšimi kontekstualnimi namigi (npr. podrobnosti o »kaj«, »kje«, »kdaj«) prav tako zaščiteni pred s starostjo povezanim upadom utrjevanja spanja [27].
cistanche bodybuilding
Glede na to, da je pravočasna izvedba namenov nujno odvisna od uspešne uporabe okoljskih in časovnih informacij, smo poskušali preveriti, ali bi se prospektivna konsolidacija spomina ohranila s staranjem. V naši prejšnji študiji o mladih odraslih [28] smo ugotovili, da je v primerjavi z dnevno budnostjo obdobje spanja čez noč koristilo spontanemu priklicu namer, ki so sestavljale povezane pare iztočnic in dejanj (npr. vklop alarma kot odgovor na ciljno besedo "ura" ) [29].
Nasprotno pa spanje ni izboljšalo izvajanja semantično nepovezanih parov iztočnica-dejanje (npr. zapiranje knjige kot odziv na "ogledalo"), kar nakazuje, da lahko to spanje prednostno olajša namere, ki vključujejo že obstoječe asociacije. Poleg tega se je višja izvedba povezanih namenov po spanju zgodila brez dodatnih stroškov za tekočo nalogo, kar kaže na učinek, specifičen za spanje, na spontano vrnitev v nasprotju s skrbno zahtevnim postopkom spremljanja iztočnice. Trajanje spanja po kodiranju N3 je bilo pozitivno povezano z izvedbo povezanih namenov. Glede na trajanje počasnih valov [30] in amplitudo počasnih nihanj [31, 32]
se s staranjem znatno zmanjšajo, je odprto vprašanje, ali bi poslabšanje spanja pri starejših odraslih vplivalo na bodoči spomin. Prej je metaanaliza poročala, da je bil učinek spanja na prospektivni spomin pri starejših odraslih majhen in ni bil statistično pomemben [33]. Vendar je ta velikost učinka temeljila izključno na opazovalnih študijah, saj takrat ni bil izveden noben poskus za primerjavo učinkov spanja in budnosti na prospektivni spomin starejših odraslih. Nedavno so Rehel et al. uporabili paradigmo virtualnega okolja.' so poročali o koristih spanja za prospektivni spomin starejših odraslih, zlasti za povezane namere [34].
Vendar pa vloga arhitekture spanja pri konsolidaciji namere ni bila ovrednotena. Da bi odpravili to vrzel, smo primerjali prospektivno zmogljivost spomina po tem, ko smo s polisomnografijo spremljali spanje v primerjavi z budnostjo pri mlajših in starejših odraslih ter preučili, ali je mogoče starostne razlike pripisati spremembam v razmerju med spanjem in spominom. Domnevali smo, da bi bil učinek spanja na prospektivno utrjevanje spomina pri starejših odraslih manjši v primerjavi z mladimi odraslimi in da bi to spremljale spremembe v povezavi s spanjem.
Metode
Udeleženci
Rekrutiranih je bilo 60 zdravih starejših odraslih (starostni razpon: 57–77 let) in primerjanih z 49 mladimi odraslimi (starostni razpon: 19–25 let) iz predhodne študije [28].
Older adult participants were native English speakers recruited from the Singapore-Longitudinal Aging Brain Study [35] or by word of mouth. Participants had no history of significant vascular events (i.e. myocardial infarction, stroke, or peripheral vascular disease), malignant neoplasia of any form, cardiac, lung, liver, or kidney failure, active or inadequately treated thyroid disease, and no active neurological or psychiatric conditions. In addition, all participants scored >26 on the Mini-Mental State Examination [36], and >5 na 15-postavki spremenjena lestvica za odkrivanje geriatrične depresije, ki kaže na odsotnost simptomov depresije [37].
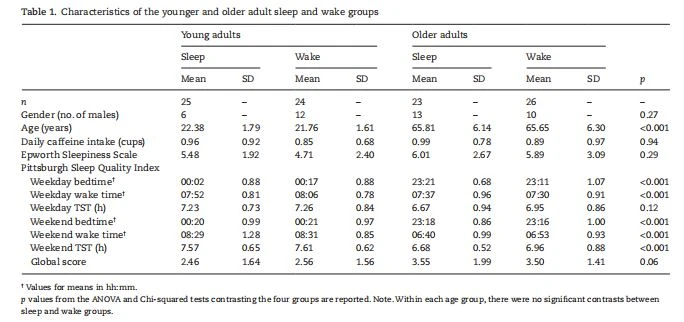
Udeleženci so bili pregledani glede simptomov spalne apneje z uporabo Berlinskega vprašalnika [38]. Vsi udeleženci so dali informirano soglasje v skladu s protokolom, ki ga je odobril Institucionalni revizijski odbor Nacionalne univerze v Singapurju. Starejši odrasli so bili enakomerno randomizirani v skupine spanja in budnosti. Skupaj je 11 udeležencev napačno razumelo navodila za nalogo in navedlo, da njihov slab spanec v laboratoriju ni reprezentativen za njihov običajni spanec. Po izključitvi teh 11 udeležencev iz vseh analiz je končni vzorec sestavljalo 49 starejših odraslih (povprečna starost ± SD: 65,7 ± 6,3 let, 23 moških, tabela 1) in 49 mladih odraslih (povprečna starost ± SD: 21,8 ± 1,61 let, 18 samci). Znotraj vsake starostne skupine se skupine spanja in budnosti niso razlikovale po starosti, porazdelitvi po spolu, uživanju kofeinskih pijač na dan, stopnji dnevne zaspanosti, merjeni z Epworthovo lestvico zaspanosti [39], ali spalnih navadah po lastni oceni in subjektivni kakovosti spanja kot merjeno s Pittsburghovim indeksom kakovosti spanja [40] (p > 0,26). V skladu s trendi, o katerih poročajo drugje [41–43], so se spalne navade med starostnimi skupinami razlikovale. V primerjavi z mladimi odraslimi so starejši poročali o zgodnjem spanju in prebujanju tako ob delavnikih kot ob vikendih (ps < 0,001).="" ta="" razlika="" v="" času="" spanja="" je="" bila="" še="" posebej="" izrazita="" ob="" koncih="" tedna,="" kar="" je="" povzročilo="" znatno="" krajši="" čas="" spanja="" pri="" starejših="" odraslih="" ob="" koncih="" tedna="" (p=""><>
Protokol študije
Udeležencem je bilo naročeno, naj se držijo doslednega urnika spanja v treh dneh pred študijo, skladnost s tem navodilom pa je bilo preverjeno z aktigrafijo zapestja (Actiwatch 2, Philips Respironics, Murrysville, PA). Seje kodiranja in pridobivanja namena so potekale v 12-urnem presledku in so vključevale bodisi obdobje nočnega spanja v laboratoriju, spremljanega s polisomnografijo, bodisi obdobje dnevne budnosti (dremanje ni dovoljeno).
Udeleženci, dodeljeni skupini za spanje, naj bi prispeli v laboratorij ob 21:00 popoldne. Seja kodiranja namere je bila izvedena ob 21.30 in je trajala približno 30–40 minut. Uporabljena je bila polisomnografija in udeleženci so spali in se zbujali ob običajnem času spanja (med 23:00 popoldne in 08:00 zjutraj). Naslednje jutro je bila ob 09:30 izvedena seja priklica namere. V skupini za prebujanje so udeleženci prispeli v laboratorij zjutraj na sejo kodiranja namere, ki se je začela ob 09.30.
Po zaključku so bili odpuščeni in jim je bilo naročeno, naj se vključijo v svojo dnevno rutino, vendar naj se izogibajo dremežu in uživanju kofeinske hrane in pijač. Udeleženci naj bi se zvečer vrnili v laboratorij za sejo za pridobitev namena, ki je potekala ob 21.30.

cistanche bodybuilding
Pred vsako sejo so bili udeleženci naprošeni, da poročajo o svoji ravni subjektivne budnosti na Karolinski lestvici zaspanosti (1—zelo budno, 9—zelo zaspano, velik trud, da ostanejo budni). Na koncu končne seje priklica namere so bili udeleženci seznanjeni in opravljen je bil kratek intervju, da bi preverili strategije, ki so jih morda uporabili, in preverili, ali so v celoti razumeli zahteve naloge. Na primer, nekateri udeleženci niso uspeli uresničiti svojih namenov ne zato, ker so pozabili, ampak zato, ker so postali zmedeni glede navodil naloge.
Prospektivna spominska naloga
Prospektivna spominska naloga je od udeležencev zahtevala, da se spomnijo izvajanja dejanj, ko naletijo na napotne besede med izvajanjem tekoče naloge semantične kategorizacije [28]. Verjetnost spontanega priklica dejanja je bila manipulirana s spreminjanjem sorodnosti iztočne besede in povezanega dejanja. V primerjavi s pomensko nepovezanimi pari iztočnica-ukrepanje ("ogledalo zapri knjigo") je večja verjetnost, da bodo pomensko povezani pari iztočnica-ukrepanje ("telefon odklopi slušalke") sprožili spontani asociativni proces iskanja, pri čemer se namera refleksivno spomni, ko je iztočnica beseda naleti med nalogo semantične kategorizacije [29]. Seja kodiranja namere je vključevala seznanitev udeležencev z nalogo semantične kategorizacije. Potem ko so udeleženci enkrat izvedli to nalogo, je eksperimentator pojasnil, da bodo v seji 12 ur kasneje morali ponovno izvesti nalogo semantične kategorizacije, zdaj pa se bodo morali spomniti tudi na izvedbo določenih dejanj, ko bodo med nalogo naleteli na določene besede.
To je predstavljalo prospektivno spominsko nalogo - udeleženci bi se morali spomniti izvesti ta dejanja kot odgovor na pravi znak, ne da bi jih eksperimentator opomnil. Pri vsakem preizkusu naloge semantične kategorizacije so morali udeleženci ugotoviti, ali je beseda, prikazana na levi strani računalniškega zaslona, član kategorije, ki je prikazana desno od nje ("hokejski ŠPORT"). Za označevanje odgovorov "da" ali "ne" so udeleženci na tipkovnici pritisnili "1" oziroma "2". Naloga semantične kategorizacije je bila sestavljena iz 144 poskusov. Učinkovitost je bila prikazana z deležem poskusov, na katere so se pravilno odzvali. Izpeljani so bili mediani reakcijski časi (RT) za ta pravilna preskušanja za vsakega udeleženca. V seji kodiranja namere so po izvedbi svoje prve semantične kategorizacijske naloge udeležencem pokazala naslednja navodila: "Poleg te semantične kategorizacijske naloge nas sekundarno zanima vaša sposobnost, da si zapomnite izvedbo prihodnjih dejanj. Ko se vrnete na lab kasneje, boste to nalogo izvedli znova. To je seznam besed z dejanji, povezanimi z vsako besedo. Ko boste med opravljanjem naloge videli katero koli od teh besed, se boste morali spomniti, da morate izvesti povezano dejanje. Ko opazite besedo, najprej pritisnite 'Q', da začasno ustavite poskus, nato izvedite dejanje. Če se spomnite, potem ko je poskus že mimo, lahko še vedno pritisnete 'Q' in izvedete dejanje. Po izvedbi dejanja nadaljujte z naslednji poskus naloge kategorizacije. Upoštevajte, da se bodo ciljne besede pojavile kot del naloge kategorizacije. Lahko so prisotne kot beseda z malimi črkami ali beseda z velikimi črkami. NE BOSTE opomnili na t njegovo navodilo na naslednji seji."
Udeleženci so nato nadaljevali z učenjem osmih namenov, od katerih so štirje obsegali sorodne pare iztočnica-dejanje (npr. vklop alarma kot odgovor na ciljno besedo "ura"), ostali štirje pa semantično nepovezani pari iztočnica-dejanje (npr. zapiranje knjiga kot odgovor na "ogledalo"; za vse podrobnosti glejte Leong et al. 2019). Predvsem je bilo treba vse namere fizično izvesti na predmetih, ki so bili nameščeni v sobi za testiranje. Udeleženci so imeli 10 minut časa za preučevanje osmih parov in so morali ustno priklicati pare eksperimentatorju, dokler niso vsi pravilno priklicani. Vsi udeleženci so pri prvem poskusu priklica dosegli 100-odstotno natančnost. V seji za iskanje namere 12 ur kasneje je bila udeležencem predstavljena naloga semantične kategorizacije.
Eksperimentator udeležencev ni spomnil na bodočo spominsko nalogo. Vsak znak se je pojavil enkrat znotraj naloge semantične kategorizacije in v istem vrstnem redu za vse udeležence. Natančnost prospektivne spominske naloge je bila kvantificirana z odstotkom iztočnic, ki so se pravilno odzvale v petih poskusih naloge semantične kategorizacije. Na koncu semantične kategorizacije so udeleženci prejeli preizkus prepoznavanja iztočnic in dejanj. To nam je omogočilo ugotoviti, ali so prospektivne okvare spomina posledica napak v retrospektivni komponenti prospektivnega spomina, to je neuspeh pri izvedbi namena zaradi pozabljenega združevanja iztočnice in dejanja, ali napak v prospektivni komponenti, tj. zamuda priložnosti za izvedbo namero.
Polisomnografija
Elektroencefalografski (EEG) signali med nočnim spanjem so bili posneti s šestkanalno EEG montažo (F3-A2, F4-A1, C3-A2, C4-A1, O1-A2 in O2-A1) po sistemu 10–20. Gibanje oči in mišični tonus sta bila zabeležena z levo in desno elektrookulografsko (EOG) in submentalno elektromiografsko (EMG) elektrodo, ki se nanašata na A2 oziroma A1. Ozemljitvena in skupna referenčna elektroda sta bili postavljeni na Cz oziroma FPz. EEG, EOG in EMG signali so bili posneti z uporabo Comet Portable EEG sistema podjetja Grass Technologies (Astro-Med, Inc., West Warwick, RI). Hitrost vzorčenja in hitrost shranjevanja sta bili 800 oziroma 200 Hz. Nizkoprepustni in visokoprepustni filter sta bila nastavljena na 35 in 0,3 Hz za signale EEG ter na 70 in 10 Hz za signale EMG. Impedanca elektrode je bila pod 5 kΩ. Stopnja spanja je bila izvedena v skladu z merili Ameriške akademije za medicino spanja [44].
Izvedena sta bila TST in trajanje vsake faze spanja. Glede na težave v zvezi z uporabo praga fiksne amplitude za opredelitev N3 pri starejših odraslih, ki lahko povzroči podcenjevanje trajanja N3 in posledično precenjevanje trajanja N2 pri starejših odraslih [45], smo analizirali spektralno moč v območju delta (0.5–4 Hz) in območje sigma (12–15 Hz), posneto iz C3 in F3. Za oceno spalnih vreten smo izvedli samodejne analize zaznavanja spalnih vreten z uporabo paketa Wonambi Python, v5.24 z algoritmom, ki so ga razvili Wamsley et al. [46] Na kratko, izvedena je bila Morletova valovna transformacija signala C3-A2 brez artefaktov in izračunano drseče povprečje na lestvici valovnih valov, ki ustreza 12–15 Hz, z drsečim oknom 100-ms . Vretena so bila zaznana vsakič, ko je drseče povprečje preseglo stalni prag (4,5-kratna povprečna amplituda signala vseh obdobij brez artefaktov) za 0.3–3.0 s.
Ta algoritem smo izbrali, ker je prejšnja študija poročala, da je dosegel najboljšo zmogljivost v primerjavi z več drugimi avtomatiziranimi detektorji vretena, pri čemer je dosegel najbolj uravnotežen priklic in natančnost ter najvišjo oceno F1 [47]. Število vreten, gostota (na minuto), trajanje (s) in moč (µV2 /Hz) so bili izračunani za vse epohe NREM iz elektrod C3-A2.
Statistične analize
Vse analize so bile izvedene s SPSS 26.0 (IBM, Chicago, ZDA). Da bi ugotovili, ali bi spanje koristilo izvajanju prospektivnih spominskih namer v primerjavi s skupino budnosti in ali bi to vplivalo na starostno skupino in sorodnost namere, smo izvedli analizo variance s ponavljajočimi se meritvami (ANOVA) za odstotek prospektivnega spomina. namere, ki se izvajajo s spanjem (spanje, budnost), starostno skupino (mladi, stari) in sorodstvom (povezano, nepovezano) kot napovedovalci. Da bi preverili, ali bi učinke interakcije razložili z razlikami v subjektivni zaspanosti, smo izvedli analizo variance s ponavljajočimi se meritvami (ANOVA) za subjektivno zaspanost s spanjem (spanje, budnost), starostno skupino (mladi, stari) in sejo ( kodiranje, iskanje) kot napovedovalci. Kontrasti skupin so bili testirani z neodvisnimi vzorci in primerjave med pogoji so bile testirane s t-testi parnih vzorcev. Za uspešnost testa prepoznavanja smo ocenili statistično pomembnost uspešnosti starejših odraslih s t-testom enega vzorca proti 100 odstotkom.
Poleg tega smo izvedli Pearsonove korelacijske analize v vsaki starostni skupini posebej, da bi raziskali razmerje med parametri spanja in koristmi spanja za spomin. Da bi čim bolj zmanjšali lažne pozitivne rezultate, smo izvedli korelacije pri starejših odraslih samo za spominske spremenljivke, pri katerih je bila ugotovljena eksperimentalna korist spanja nad budnostjo pri mladih odraslih. Za testiranje pomembnosti razlike med korelacijami smo uporabili Fisher-z-transformacijo.
Nazadnje so bile izvedene ANOVA s ponavljajočimi se meritvami za natančnost in reakcijski čas pri tekoči nalogi semantične kategorizacije, da bi primerjali relativno uporabo virov za spremljanje med mlajšimi in starejšimi odraslimi. Kot napovedovalci so bili vključeni spanje (spanje, budnost), starostna skupina (mladi, stari) in seja (kodiranje, iskanje). Kontrasti skupin so bili preizkušeni z neodvisnimi vzorci, primerjave med sejami pa so bile preizkušene s t-testi parnih vzorcev.
Rezultati
Starostne razlike v polisomnografskih parametrih spanja
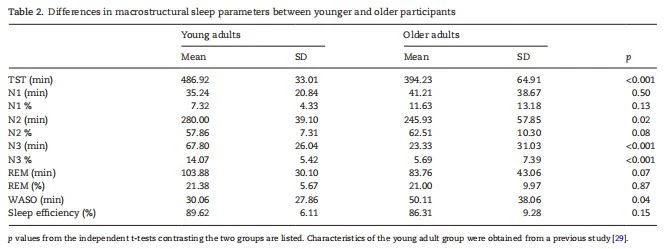
Med nočnim spanjem v laboratoriju so starejši odrasli pridobili bistveno manj TST, N2 in N3 (ps < 0.02,="" tabela="" 2)="" in="" imeli="" več="" waso="" (p="" {{5}="" }.04)="" v="" primerjavi="" z="" mladimi="" odraslimi.="" ni="" bilo="" razlik="" med="" starostnimi="" skupinami="" v="" količini="" spanja="" n1="" in="" rem="" (ps=""> 0.07) ali učinkovitosti spanja (p=0.15). Starejši odrasli so imeli znatno zmanjšano delta moč NREM in sigma moč v primerjavi z mladimi odraslimi (ps < 0,001),="" imeli="" pa="" so="" tudi="" nižje="" število="" vreten="" (p="0.01)" in="" krajše="" trajanje="" vretena="" (p="0.04" ).="" med="" starostnimi="" skupinami="" ni="" bilo="" pomembnih="" razlik="" v="" gostoti="" in="" moči="" vretena="" (p=""> 0,07).
Prospektivna zmogljivost pomnilnika
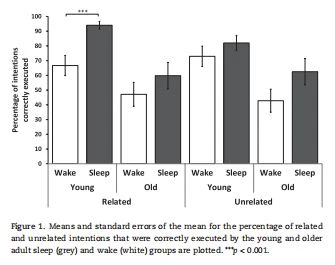
Ugotovili smo pomembno interakcijo med spanjem × starostno skupino x sorodnostjo (F {{0}}.71, p=0.01, slika 1). Za sorodne namere, glede na dnevno budnost, je spanje čez noč koristilo učinkovitosti pri mladih odraslih (t=3,79, p < 0,001),="" ne="" pa="" tudi="" pri="" starejših="" (t="1,05," p="0" .30,="" starostna="" skupina="" x="" interakcija="" spanja:="" f="1.09," str="0.30)." nasprotno="" pa="" nepovezani="" nameni="" niso="" imeli="" koristi="" od="" spanja="" v="" primerjavi="" z="" budnostjo="" v="" obeh="" starostnih="" skupinah="" (mladi:="" t="1.07," p="0.29," starejši:="" t="1.67," p="0.10," starostna="" skupina="" ×="" interakcija="" spanja:="" f="0.53," str="0.47)." to="" kaže,="" da="" je="" spanje="" olajšalo="" spontano="" ponovno="" vzpostavitev="" namer,="" ki="" so="" vsebovale="" že="" obstoječe="" asociacije,="" samo="" pri="" mladih,="" ne="" pa="" tudi="" starejših="" odraslih.="" nazadnje="" smo="" opazili="" glavni="" učinek="" starostne="" skupine="" (f="14.75," p="">< 0,001),="" ki="" je="" pokazal,="" da="" so="" po="" pričakovanjih="" mladi="" odrasli="" bolje="" opravili="" prospektivno="" nalogo="" spomina="" v="" primerjavi="" s="" starejšimi="">
Pri starejših odraslih je bilo 9,14 odstotka prospektivnih napak spomina posledica dejanj, izvedenih kot odgovor na napačen znak. Verjetnost, da se to zgodi, je bila skoraj dvakrat večja pri nepovezanih parih iztočnic v primerjavi s povezanimi pari iztočnic (64,7 odstotka v primerjavi s 35,3 odstotki). Medtem ko so vsi mladi odrasli dosegli 100 odstotkov pri nalogi prepoznavanja, so se starejši odrasli bistveno slabše odrezali (povprečje ± SEM: 82,35 odstotka ± 4,68 odstotka, t=3.77, p < 0,001),="" kar="" poudarja="" starost="" -povezano="" poslabšanje="" retrospektivne="" konsolidacije="" spomina.="" rezultati="" prepoznavanja="" besednih="" parov="" so="" bili="" številčno="" višji="" pri="" starejših="" odraslih,="" ki="" so="" spali,="" v="" primerjavi="" s="" tistimi,="" ki="" so="" po="" kodiranju="" ostali="" budni,="" vendar="" ta="" razlika="" ni="" bila="" pomembna="" (povprečje="" ±="" sem;="" spanje:="" 86.98="" odstotkov="" ±="" 6,53="" odstotka="" v="" primerjavi="" z="" budnostjo:="" 78,44="" odstotka="" ±="" 6,68="" odstotka,="" t="3.81," p="">
Za razliko od mladih odraslih, katerih prospektivne napake v spominu so bile v celoti pripisane temu, da so pozabili izvršiti namero ob pravem času (tj. napake v prospektivni komponenti), so bili starejši odrasli prikrajšani tudi zaradi pozabljanja vsebine namere (tj. napake v retrospektivni komponenti). .
Nismo našli pomembnih interakcij ali glavnih učinkov (ps > 0.22, dodatna tabela 1) na rezultate KSS, kar kaže, da bodoče razlike v spominu med starostnimi skupinami niso bile posledica razlik v subjektivni zaspanosti.
Razmerje med arhitekturo spanja in predvideno zmogljivostjo spomina
Prej smo poročali, da je bilo pri mladih odraslih izboljšanje spanja za izvedbo povezanih namenov povezano s količino N3, pridobljenega po kodiranju namere (r=0.46, p=0.0 2; tabela 3). Čeprav ni bilo učinka spanja v primerjavi z budnostjo na sorodne namere pri starejših odraslih, smo testirali to povezavo spomina s trajanjem N3 pri starejših odraslih, da bi posebej preverili, ali bi spremenjeno razmerje med spanjem in spominom pojasnilo zmanjšan učinek spanja pri starejših odraslih. Predvsem v nasprotju z mladimi odraslimi ni bilo pomembne povezave med N3 in konsolidacijo PM pri starejših odraslih (r=−0,16, p=0.46, z=2.10, p=0.02).

Nismo našli nobenih pomembnih povezav med delta močjo NREM in izvajanjem povezanih namer pri mladih odraslih (C3: r=0.04, p=0).87, F3: r {{ 6}}.08, p=0.76) ali starejši odrasli (C3: r=0.25, p=0.25, F3: r {{16 }}.20, str=0.39). Zanimivo je, da smo opazili pomembno korelacijo s povezanimi nameni in trajanjem spanja N2 pri starejših odraslih (r=0.66, p=0.001), ki ni bila prisotna pri mladih odraslih ( r=−0,35, p=0.09, z=−3,70, p < 0,001).="" vendar="" je="" treba="" zaradi="" majhnega="" vzorca="" to="" ugotovitev="" obravnavati="" previdno.="" poleg="" tega="" povezave="" med="" povezanimi="" nameni="" in="" močjo="" sigme="" niso="" bile="" statistično="" značilne="" v="" obeh="" starostnih="" skupinah="" (ps=""> 0,40). Podobno povezave s povezanimi nameni in številom vreten, gostoto, trajanjem in močjo niso bile pomembne v obeh starostnih skupinah (ps > 0,31). Drugih pomembnih povezav z drugimi parametri spanja ni bilo.
Izvedba naloge semantične kategorizacije
Interakcija spanja × starostna skupina × seja ni bila pomembna za natančnost (F=3.73, p=0.06) ali reakcijski čas (F=0.31, p {{6} }.58), kar kaže, da za obe starostni skupini spanje ni moduliralo dodatnih virov, potrebnih za spremljanje opozorilnih besed pri pridobivanju glede na seje kodiranja. Z drugimi besedami, spanje ni povečalo obsega strateškega spremljanja v nobeni starostni skupini.
Ni bilo pomembnih dvosmernih interakcij (ps > 0.23). Vendar je bil glavni učinek seje pomemben za natančnost (F=198.60, p < 0.001)="" in="" reakcijski="" čas="" (f="55.67," p=""><0,001), kar="" kaže,="" da="" sta="" imeli="" obe="" skupini="" slabšo="" natančnost="" in="" daljše="" reakcijske="" čase="" pri="" pridobivanju="" v="" primerjavi="" s="" sejo="" kodiranja,="" ne="" glede="" na="" to,="" ali="" sta="" spali="" ali="" ostali="" budni.="" to="" nadalje="" nakazuje,="" da="" sta="" obe="" starostni="" skupini="" izvajali="" enako="" raven="" strateškega="" spremljanja="" iztočnic="" v="" pogojih="" spanja="" in="">
Diskusija
Medtem ko je bilo s starostjo povezano zmanjšanje koristi spanja za deklarativno utrjevanje spomina ugotovljeno z eksperimentalnimi in metaanalitičnimi dokazi [7, 9, 48], so nedavno zanimivi dejavniki, ki lahko modulirajo učinek starosti na prospektivni spomin, odvisen od spanja. Glede na domnevo, da lahko pomembnost gradiva, ki si ga je treba zapomniti, vpliva na učinek spanja na utrjevanje spomina [17], je ta študija preučevala prospektivni spomin z uporabo naloge, ki je posnemala vsakodnevno spominjanje namenov, ki so vključevali dejansko izvedbo kodiranih namenov. . Medtem ko je spanje spodbudilo izvajanje povezanih namenov pri mladih odraslih, nismo opazili s spanjem povezanih izboljšav za izvajanje namenov v naši skupini starejših odraslih, kar kaže na to, da se starostne okvare, opažene pri od spanja odvisni deklarativni konsolidaciji spomina, lahko razširijo na prospektivni spomin. Uspešna izvedba namere vključuje priklic prospektivne komponente (tj. samoiniciirana pravočasna izvedba) in retrospektivne komponente (tj. priklic parov iztočnice in dejanja).
Pravočasna izvedba se opira na samoiniciativno vrnitev, ki jo sproži pojav iztočnice, čemur nato sledi namerno in usmerjeno iskanje pravilnega dejanja za izvedbo. Predvsem smo opazili s starostjo povezane motnje pri konsolidaciji, odvisni od spanja, retrospektivnih (tj. združevanje namigov in dejanj) in prospektivnih komponent (tj. pravočasna izvedba) naloge PM. Medtem ko so primanjkljaji pri konsolidaciji retrospektivne komponente v skladu s prejšnjimi študijami, ki so poročale o motnjah pri utrjevanju besednih parov [15, 49, 50] in lokacij predmetov [51] z naraščajočo starostjo, so starostne razlike pri konsolidaciji prospektivne komponente sorazmerno manj raziskani.
Prospektivno priklic spomina se lahko pojavi po dveh poteh: (1) strateško spremljanje pojava znaka [29] in/ali (2) spontano priklic namere. Vedenje spremljanja je lahko indeksirano z zmanjšano natančnostjo in podaljšanimi odzivnimi časi pri tekoči semantični kategorizaciji v seji pridobivanja v primerjavi s sejo kodiranja. Medtem ko smo, kot je bilo pričakovano, opazili te spremembe od kodiranja do sej pridobivanja, se te spremembe niso razlikovale med zadrževanjem spanja in budnosti, kar kaže, da spanje ni spremenilo vedenja spremljanja. Tudi te spremembe so bile podobne med obema starostnima skupinama, kar kaže, da sta bili obe starostni skupini spremljani v enaki meri. Pri starejših odraslih so bile spremembe v uspešnosti semantične kategorizacije podobne v intervalih zadrževanja spanja in budnosti, kar kaže, da spanje ni povečalo njihovega vedenja spremljanja. Videti je tudi, da spanje pri starejših odraslih ni olajšalo spontanega vračanja.
Spontani priklic, ki se odraža v uspešni izvedbi povezanih (visoka verjetnost spontanega priklica) namesto nepovezanih namenov (majhna verjetnost spontanega priklica), ni bil boljši po spanju v primerjavi z budnostjo pri starejših odraslih. Nasprotno pa je bilo pri mladih odraslih večja verjetnost, da bodo izvršili povezane kot nepovezane namene po spanju v primerjavi z budnostjo, kar razkriva koristne učinke spanja pri omogočanju spontanega vračanja v to starostno skupino. Kateri mehanizmi bi lahko bili osnova te starostne razlike v učinkih spanja na spontano vrnitev? Pri mladih odraslih lahko ponovna aktivacija spomina, ki jo poganja spanec N3, okrepi aktivacijo sorodnih namenov v mirovanju, kar olajša spontano asociativno iskanje, ko naletimo na znak [28, 52]. Predlagano je bilo, da lahko s starostjo povezano zmanjšanje N3 povzroči okvare epizodne konsolidacije spomina pri starejših odraslih, kar so podprle študije, ki poročajo, da so starostni primanjkljaji pri konsolidaciji, odvisni od spanja, sorazmerni z obsegom SWS [53]. starost SWA se zmanjša [14, 54].
Obstajajo tudi dokazi, da je razmerje med spanjem in konsolidacijo spomina lahko funkcionalno spremenjeno pri starejših odraslih. Na primer, pomembne in pozitivne povezave med količino N3 in epizodno konsolidacijo spomina, opažene pri mladih odraslih, so lahko odsotne ali obrnjene pri starejših odraslih [15, 16], kar kaže na omejeno vlogo spanja N3 za spomin, ki lahko pojasni nedosledne ugotovitve v tem skupina. Ta vzorec je skladen s sedanjimi ugotovitvami. V nasprotju z mladimi odraslimi v našem vzorcu starejših odraslih nismo našli pomembne korelacije med izvršitvijo namere in N3, kar kaže na to, da je lahko funkcija N3 za prospektivni spomin v tej starostni skupini ovirana, zaradi česar je neučinkovita. Študije trdijo, da lahko staranje moti natančno povezavo med potenciali polja med spanjem NREM, ki poganja hipokampalno-neokortikalni dialog, pomemben za konsolidacijo spomina [1].
Ko počasne valovne oscilacije ne privabljajo več spalnih vreten, sta lahko ponovna aktivacija in preoblikovanje spominskih sledi čez noč ovirana [50, 55], kar lahko pojasni, zakaj zgolj razpoložljivost SWS morda ne napoveduje delovanja spomina pri starejših odraslih. Zmanjšana sposobnost atrofiranih možganskih področij, da podpirajo ta proces reaktivacije, ki ga poganja spanje, lahko prav tako prispeva k nedoslednim ugotovitvam. Na primer, tudi ko je bila ponovna aktivacija predhodno naučenega materiala inducirana od zunaj, starejši odrasli niso pokazali izboljšanega priklica po spanju kljub oscilatornim dokazom, da je bilo namigovanje uspešno [56]. Prospektivno pomnjenje prek spontanega priklica je bilo povezano z volumnom hipokampusa [57, 58], starostne razlike v prospektivni zmogljivosti pomnjenja pa so bile povezane z zmanjšano aktivacijo v medialnih temporalnih regijah [59].
Možno je, da čeprav je spanje morda okrepilo predstavitve namere, nevronski sistem, ki podpira spontano vrnitev, morda ni bil dovolj robusten, da bi vzdrževal potrebno aktivacijo, potrebno za spontano vrnitev namere. Z drugimi besedami, s starostjo povezana možganska atrofija lahko ne samo poslabša ustvarjanje kakovosti N3 [14,31], ampak lahko tudi omeji sinaptično plastičnost, potrebno za prospektivno konsolidacijo spomina. Zanimivo je, da smo pri starejših odraslih opazili korelacijo med povezanim izvajanjem namere in spanjem N2. Predvsem se spanje N2 relativno ohranja s staranjem in se med 20. in 70. letom poveča za približno 5 odstotkov, kar je obraten vzorec od N3, ki se zmanjša za 2 odstotka na desetletje [30]. Čeprav se ob tem postavlja vprašanje, ali spanje N2 morda igra kompenzacijsko vlogo za prospektivni spomin, je potrebna previdnost pri razlagi tega rezultata, saj nismo našli koristi spanja v primerjavi z budnostjo za prospektivni spomin starejših odraslih. Poleg tega je nedavna študija tudi nakazala, da ima spanje REM lahko večjo vlogo pri bodoči utrditvi spomina s staranjem [60]. Podobno kot N2 se tudi REM spanje s staranjem razmeroma ohranja in lahko igra vlogo pri podpiranju kognicije, ko SWS upada [61, 62]. Vendar pa v tem delu nismo našli povezave s spanjem REM. Prihodnje študije na večjih vzorcih s starostjo kot stalno spremenljivko, ki vključujejo skupino za nadzor budnosti, so potrebne za obravnavo teh odprtih vprašanj pri raziskavah spanja in staranju.

cistanche bodybuilding
Omejitve
Čeprav je bilo teoretizirano, da spomin za "nameno" v primerjavi z "vsebino" vključuje performativno komponento, ki mu daje posebno pomembnost [63, 64], je možno, da so starejši odrasli še vedno dojemali laboratorijsko zasnovano nalogo PM kot razmeroma abstraktno. Prejšnja literatura je opazila "paradoks starost-PM", pri čemer se starostni primanjkljaj, ki ga pogosto opazimo pri laboratorijskih nalogah PM, obrne, ko so naloge PM namesto tega vgrajene v naravne nastavitve (npr. zapomniti si, da bi eksperimentatorju poslal SMS na določen datum) [65, 66]. Predvsem nedavna študija, ki je uporabljala zasnovo znotraj subjekta z uporabo paradigme virtualnega muzeja, je odkrila izboljšanje spanja pri bodočem pomnjenju pri starejših odraslih [34]. Čeprav je imela sedanja naloga PM vedenjski pomen, morda še vedno ni imela osebnega pomena za starejše udeležence. Prejšnje delo je pokazalo, da lahko moč kodiranja začetne spominske sledi vpliva na konsolidacijo spanja [67, 68].
Možno je, da v našem vzorcu starejših odraslih nismo opazili pomembnih učinkov konsolidacije spomina, odvisnih od spanja, zaradi kakovosti kodiranja namenov. Vendar šibko kodiranje ne more razložiti naših ugotovitev, saj smo zagotovili natančnost kodiranja med sejo kodiranja pred spanjem in iz analiz izključili tudi tiste, ki so poročali o zmedi glede navodil za nalogo. Nadalje, ker so bili udeleženci samo enkrat testirani na parih po kodiranju, je malo verjetno, da so bile povezave močne do te mere, da so bili učinki spanja odveč [69].
Ta študija ni vključevala cirkadiane kontrolne skupine za nadzor različnih časov testiranja v skupinah spanja in budnosti. Kljub temu nismo našli pomembnih razlik v subjektivnih meritvah zaspanosti pri kodiranju ali priklicu med skupinami budnosti in spanja. Prihodnje študije lahko razmislijo o uporabi paradigme dremeža, kjer lahko udeleženci kodirajo in se testirajo ob istem času, da bi izključili cirkadiane vplive.
Sklepi
Naše ugotovitve dodajajo eksperimentalne dokaze doslej predvsem opazovalnim dokazom [33], ki kažejo, da spanje ne koristi prospektivni konsolidaciji spomina pri starejših odraslih. Skupaj to delo prispeva k literaturi o dejavnikih, ki spreminjajo starostne učinke na konsolidacijo spomina, odvisno od spanja.
Naše ugotovitve kažejo, da staranje oslabi od spanja odvisno prospektivno konsolidacijo spomina in da je to lahko povezano s spremembami v vlogi spanja pri podpiranju spontanega vračanja.
Reference
1. Diekelmann S, et al. Spominska funkcija spanja. Nat Rev Neurosci. 2010;11(2):114–126.
2. Plihal W, et al. Učinki zgodnjega in poznega nočnega spanca na deklarativni in proceduralni spomin. J Cogn Neurosci. 1997; 9 (4): 534–547.
3. Stickgold R, et al. od spanja odvisna triaža spomina: razvijajoča se generalizacija s selektivno obdelavo. Nat Neurosci. 2013;16(2):139–145.
4. Fischer S, et al. Spanje oblikuje spomin za spretnosti prstov. Proc Natl Acad Sci USA. 2002;99(18):11987–11991.
5. Korman M, et al. Dnevni spanec zgosti časovni potek utrjevanja motoričnega spomina. Nat Neurosci. 2007; 10 (9): 1206–1213. 6. Robertson EM, et al. Aktualni koncepti procesne konsolidacije. Nat Rev Neurosci. 2004; 5 (7): 576–582.
7. Gui WJ, et al. S starostjo povezane razlike v konsolidaciji spomina na podlagi spanja: meta-analiza. Nevropsihologija. 2017; 97: 46–55.
8. Harand C, et al. Kako staranje vpliva na konsolidacijo spomina, odvisno od spanja? Sprednji nevrol. 2012; 3: 8.
9. Scullin MK, et al. Spanje, kognicija in normalno staranje: vključevanje pol stoletja multidisciplinarnih raziskav. Perspect Psychol Sci. 2015;10(1):97–137.
10. Gudberg C, et al. Od spanja odvisna konsolidacija motoričnega spomina pri starejših odraslih je odvisna od zahtev naloge. Nevrobiolno staranje. 2015; 36 (3): 1409–1416.
11. Mantua J, et al. Spanje koristi utrjevanju učenja vizuomotorične prilagoditve pri starejših odraslih. Exp Brain Res. 2016; 234 (2): 587–595.
12. Tucker M, et al. Spanje optimizira motorične sposobnosti pri starejših odraslih. J Am Geriatr Soc. 2011; 59 (4): 603–609. 13. Rahhal TA, et al. Resnica in značaj: viri, ki se jih starejši odrasli lahko spomnijo. Psychol Sci. 2002;13(2):101–105.
14. Mander BA, et al. Prefrontalna atrofija, moteni počasni valovi NREM in oslabljen spomin, odvisen od hipokampusa pri staranju. Nat Neurosci. 2013; 16 (3): 357–364.
15. Scullin MK. Spanje, spomin in staranje: povezava med počasnim spanjem in epizodnim spominom se spreminja od mlajših do starejših odraslih. Psihološko staranje. 2013;28(1):105–114.
16. Baran B, et al. S starostjo povezane spremembe v od spanja odvisni reorganizaciji deklarativnih spominov. J Cogn Neurosci. 2016; 28 (6): 792–802.
17. Aly M, et al. Učinki spanja na epizodni spomin pri starejših in mlajših odraslih. Spomin. 2010; 18 (3): 327–334.
18. Marshall L, et al. Prispevek spanja k konsolidaciji spomina, odvisni od hipokampusa. Trendi Cogn Sci. 2007; 11 (10): 442–450.
19. Breton J, et al. Preklop stikala: mehanizmi, ki uravnavajo konsolidacijo pomnilnika. Trendi Cogn Sci. 2014; 18 (12): 629–634.
20. Drosopoulos S, et al. Funkcija spanja pri spontanem okrevanju in utrjevanju spominov. J Exp Psychol Gen. 2007; 136 (2): 169–183.
21. Fischer S, et al. Pričakovana nagrada izboljša učenje brez povezave med spanjem. J Exp Psychol Learn Mem Cogn. 2009; 35 (6): 1586–1593.
22. Abe M, et al. Nagrada izboljša dolgoročno hrambo motoričnega spomina z indukcijo pridobitev spomina brez povezave. Curr Biol. 2011; 21 (7): 557–562.
23. Wilhelm I. et al. Spanje selektivno izboljša spomin, za katerega se pričakuje, da bo pomemben v prihodnosti. J Neurosci. 2011; 31 (5): 1563–1569.
24. Cohen G. Spomin v resničnem svetu. Hove: Psychology Press; 1996. 25. Kliegel M, et al. Prospektivna raziskava spomina: zakaj je pomembna? Int J Psychol. 2003;38(4):193–194.
26. Crovitz HF, et al. Meritve vsakdanjega spomina: k preprečevanju pozabljanja. Bull Psychonomic Soc. 1984; 22 (5): 413–414.
27. Abichou K, et al. Mladim in starejšim odraslim koristi spanje, ne pa tudi aktivna budnost za utrjevanje spomina na naravne dogodke kaj-kje-kdaj. Sprednja nevrologija staranja. 2019; 11:58.
28. Leong RLF, et al. Počasen spanec olajša spontani priklic v prospektivni spomin. spi. 2019;42(4):zsz003.
29. McDaniel MA, et al. Strateški in samodejni procesi pri prospektivnem pridobivanju spomina: večprocesno ogrodje. Appl Cogn Psychol. 2000; 14: 147–144.
30. Ohayon MM, et al. Meta-analiza kvantitativnih parametrov spanja od otroštva do starosti pri zdravih posameznikih: razvoj normativnih vrednosti spanja v človeški življenjski dobi. spi. 2004; 27 (7): 1255–1273.
31. Dubé J, et al. Kortikalno tanjšanje pojasnjuje spremembe v počasnih valovih spanja v odrasli dobi. J Neurosci. 2015; 35 (20): 7795–7807.
32. Landolt HP, et al. Vpliv starosti na EEG v spanju: aktivnost počasnih valov in frekvenca vretena pri moških mladih in srednjih let. Brain Res. 1996; 738 (2): 205–212.
33. Leong RLF, et al. Učinki spanja na prospektivni spomin: sistematični pregled in metaanaliza. Sleep Med Rev. 2019; 47: 18–27.
34. Rachel S, et al. Učinki spanja in starosti na bodočo konsolidacijo spomina: sprehod v virtualnem muzeju. Ure Spanje. 2019; 1 (3): 332–351.
35. Chee MW, et al. Korelacije med kognitivno funkcijo in strukturo možganov pri zdravih starejših vzhodnih Azijcih. Nevroslika. 2009;46(1):257–269.
36. Folstein MF, et al. "Mini duševno stanje". Praktična metoda za ocenjevanje kognitivnega stanja bolnikov za zdravnika. J Psychiatr Res. 1975; 12 (3): 189–198.
37. Sheikh JI, et al. Geriatrična lestvica depresije (GDS): nedavni dokazi in razvoj krajše različice. V: Brink TL, urednik. Klinična gerontologija: Vodnik za ocenjevanje in posredovanje. New York: The Haworth Press; 1986.
38. Netzer NC, et al. Uporaba berlinskega vprašalnika za identifikacijo bolnikov s tveganjem za sindrom apneje v spanju. Ann Intern Med. 1999; 131 (7): 485–491.
39. Johns MW. Nova metoda za merjenje dnevne zaspanosti: Epworthova lestvica zaspanosti. spi. 1991;14(6):540–545.
40. Buysse DJ, et al. Pittsburški indeks kakovosti spanja: nov instrument za psihiatrično prakso in raziskave. Psychiatry Res. 1989; 28 (2): 193–213.
41. Campbell SS, et al. Narava spontanega spanja v odrasli dobi. J Sleep Res. 2007;16(1):24–32.
42. Duffy JF, et al. Staranje in cirkadiani ritmi. Sleep Med Clin. 2015; 10 (4): 423–434.
43. Menih TH. Človeški cirkadiani ritmi staranja: običajna modrost morda ni vedno pravilna. J Biol ritmi. 2005; 20 (4): 366–374.
44. Iber C, et al. Priročnik AASM za točkovanje spanja in z njim povezanih dogodkov: pravila, terminologija in tehnične specifikacije. 1. izd. Westchester, IL: Ameriška akademija za medicino spanja; 2007.
45. Muehlroth BE, et al. Razumevanje medsebojnega vpliva spanja in staranja: metodološki izzivi. Psihofiziologija. 2020;57(3):e13523.
46. Wamsley EJ, et al. Zmanjšana spalna vretena in koherenca vretena pri shizofreniji: mehanizmi oslabljene konsolidacije spomina? Biol psihiatrija. 2012;71(2):154–161.
47. Warby SC, et al. Zaznavanje vretena v stanju mirovanja: zbiranje množic in ocenjevanje učinkovitosti strokovnjakov, nestrokovnjakov in avtomatiziranih metod. Nat metode. 2014;11(4):385–392.
48. Mander BA, et al. Spanje in človeško staranje. Nevron. 2017;94(1):19–36.
49. Scullin MK, et al. Učinki popoldanskega dremeža na epizodni spomin pri mladih in starejših odraslih. spi. 2017;40(5):zsx035.
50. Helfrich RF, et al. Stari možgani se med spanjem odklopijo: počasna sinhronizacija valov in vretena, možganska atrofija in pozabljanje. Nevron. 2018;97(1):221–230.e4.
51. Cherdieu M, et al. Ali starost poslabša konsolidacijo spomina, odvisno od spanja? J Sleep Res. 2014; 23 (1): 53–60.
52. Diekelmann S, et al. Spanje izboljša prospektivno pomnjenje s spodbujanjem spontano-asociativnih procesov priklica. PLoS One. 2013;8(10):e77621.
53. Backhaus J, et al. Zmanjšanje konsolidacije deklarativnega spomina v srednjih letih je povezano z zmanjšanjem počasnega spanca. Naučite se Mem. 2007; 14 (5): 336–341.
54. Varga AW, et al. Učinki staranja na dinamiko počasnega spanja in konsolidacijo človeškega prostorskega navigacijskega spomina. Nevrobiolno staranje. 2016; 42: 142–149.
55. Muehlroth BE, et al. Natančna povezava počasnega nihanja in vretena spodbuja utrjevanje spomina pri mlajših in starejših odraslih. Sci Rep. 2019; 9 (1): 1940.
56. Cordi MJ, et al. Ni učinka ponovne aktivacije besedišča pri starejših odraslih. Nevropsihologija. 2018; 119: 253–261.
57. McDaniel MA, et al. Dvojne poti do bodočega pomnjenja. Sprednji Hum Neurosci. 2015; 9: 392.
58. Gordon BA, et al. Strukturni korelati prospektivnega spomina. Nevropsihologija. 2011; 49 (14): 3795–3800.
59. Pereira N, et al. Starostne razlike v možganskih sistemih, ki podpirajo prehodne in trajne procese, vključene v prospektivni spomin in delovni spomin. Nevroslika. 2016; 125: 745–755.
60. Scullin MK, et al. Spanje s hitrim premikanjem oči posreduje s starostjo povezano upadanje bodoče konsolidacije spomina. spi. 2019;42(6):zsz055.
61. Scullin MK, et al. Dinamični prispevki spanja s počasnimi valovi in spanja REM k kognitivni dolgoživosti. Curr Sleep Med Rep. 2018; 4 (4): 284–293.
62. Pesem Y, et al.; Študijska skupina za osteoporotične zlome pri moških (MrOS). Razmerja med stopnjami spanja in spremembami kognitivnih funkcij pri starejših moških: študija spanja MrOS. spi. 2015;38(3):411–421.
63. Goschke T, et al. Predstavitev namenov: vztrajna aktivacija v spominu. J Exp Psychol Learn Mem Cogn. 1993; 19 (5): 1211–1226.
64. Kvavilashvili L. Spominjanje namere kot posebne oblike spomina. Br J Psychol. 1987; 78: 507–518.
65. Henry JD, et al. Metanalitični pregled bodočega spomina in staranja. Psihološko staranje. 2004;19(1):27–39.
66. Ihle A, et al. Prednosti starosti v vsakdanjem prospektivnem spominu: vpliv pomembnosti osebnih nalog, uporaba opomnikov in vsakodnevni stres. Neuropsychol Dev Cogn B Staranje Neuropsychol Cogn. 2012;19(1-2):84–101.
67. Muehlroth BE, et al. Kakovost pomnilnika modulira učinek staranja na konsolidacijo spomina med spanjem: zmanjšano vzdrževanje, vendar nedotaknjen dobiček. Nevroslika. 2020;209:116490.
68. Sonni A, et al. Spanje ščiti spomine pred motnjami pri starejših odraslih. Nevrobiolno staranje. 2015; 36 (7): 2272–2281.
69. Schoch SF, et al. Modulacijski vplivi moči spomina in občutljivosti testa priklica na zaznavnost učinka konsolidacije spanja. Neurobiol Learn Mem. 2017; 145: 181–189.


