
Oralni dejavnik, ki povzroča hipoksijo, zaviralec prolil hidroksilaze Enarodustat preprečuje spremembe v ledvični energetski presnovi v zgodnjih fazah diabetične ledvične bolezni
Mar 02, 2022
Kontakt: emily.li@wecistanche.com
Uvod
Oddelek za nefrologijo in endokrinologijo Medicinske fakultete Univerze v Tokiu, Tokio, Japonska; Raziskovalna štipendija za mlade znanstvenike, Japonsko društvo za promocijo znanosti, Tokio, Japonska; Laboratoriji za biološke in farmakološke raziskave,
Central Pharmaceutical Research Institute, Japan Tobacco Inc., Takatsuki, Japonska; Oddelek za sistemsko farmakologijo, Medicinska fakulteta Univerze v Tokiu, Tokio, Japonska; Laboratorij za sintezno biologijo, RIKEN Center for Biosystems Dynamics Research, Suita, Japonska; in Mednarodni raziskovalni center WPI za nevrointeligenco, Inštituti za napredne študije Univerze v Tokiu (UTIAS), Univerza v Tokiu, Tokio, Japonska.
Zaviralci prolil hidroksilaze faktorja, ki povzroča hipoksijo (HIF), znani tudi kot stabilizatorji HIF, povečajo proizvodnjo endogenega eritropoetina in služijo kot nova terapevtska sredstva proti anemiji prikroničnoledvicabolezen. HIF inducira izražanje različnih genov, povezanih z energijskim metabolizmom, kot adaptivni odziv na hipoksijo. Vendar pa ostaja nejasno, kako presnovno reprogramiranje notranjega tkiva s stabilizacijo HIF vpliva na patofiziologijoledvica bolezni. Prejšnje študije kažejo, da sistemske presnovne motnje, kot sta hiperglikemija in dislipidemija, povzročajo spremembe ledvičnega metabolizma, kar vodi do ledvične disfunkcije, vključno z diabetično boleznijo ledvic. Tukaj analiziramo učinke enarodustata (JTZ-951), peroralnega stabilizatorja HIF, na metabolizem ledvične energije v zgodnjih fazah diabetične ledvične bolezni z uporabo diabetičnih podgan, ki jih povzroča streptozotocin, in diabetičnih miši, ki jih povzroča aloksan. Analiza transkriptoma je pokazala, da enarodustat preprečuje spremembe presnove ledvic pri sladkorni bolezni. Analiza transkriptoma je pokazala, da je bil metabolizem maščobnih kislin in aminokislin v diabetičnem ledvičnem tkivu reguliran navzgor in znižan z enarodustatom, medtem ko je bil metabolizem glukoze reguliran navzgor. Te simetrične spremembe so bile potrjene z analizo metaboloma. Medtem ko so se presnovki cikla glikolize in trikarboksilne kisline kopičili in aminokisline zmanjšale v ledvičnem tkivu diabetičnih živali, je te presnovne motnje ublažil enarodustat. Poleg tega je enarodustatin povečal razmerje med glutationom in glutation disulfidom ter ublažil oksidativni stres v ledvičnem tkivu diabetičnih živali. Tako stabilizacija HIF prepreči spremembe v presnovi ledvične energije, ki se pojavijo pri začetnikudiabetikledvicabolezen.

Cistanche je zelo dober za delovanje ledvic
Prevajalska izjava
Zaviralci prolil hidroksilaze faktorja, ki povzroča hipoksijo (HIF) (znani tudi kot stabilizatorji HIF) povečajo proizvodnjo endogenega eritropoetina in služijo kot nova terapevtska sredstva proti anemiji prikroničnoledvicabolezen. Naše analize transkriptoma in metaboloma ledvičnega tkiva pri diabetičnih modelih pri podganah in miših so pokazale, da enarodustat (JTZ-951), peroralni stabilizator HIF, preprečuje spremembe presnove ledvične energije v zgodnjih fazah diabetične bolezni ledvic. Rezultati zagotavljajo pomembne podatke za ekstrapolacijo učinkov stabilizatorjev HIF na metabolizem ledvične energije v kliničnih okoljih, čeprav so potrebne nadaljnje študije za pojasnitev, kako to reprogramiranje ledvičnega metabolizma s stabilizatorji HIF vpliva na napredovanjediabetikledvicabolezen.
Uvod
Zaviralci prolil hidroksilaze s hipoksijo inducibilnim faktorjem (HIF) povečajo proizvodnjo endogenega eritropoetina in služijo kot nova terapevtska sredstva proti anemiji pri kroničniledvicabolezen. Celice so obdarjene z obrambnim mehanizmom proti hipoksiji, HIF pa je glavni regulator te obrambe. Ledvice so fiziološko izpostavljene hipoksiji, kronična hipoksija pa je priznana kot končna skupna pot, ki vodi do končne ledvične bolezni. Glede na to, da HIF inducira izražanje različnih genov, povezanih z odzivi na hipoksijo, imajo lahko stabilizatorji HIF pleiotropne učinke na napredovanjeledvicaboleznikot tudi izboljšanje anemije pri kroničniledvicabolezen. Zanimivo je, da HIF inducira izražanje glikolitičnih genov in piruvat dehidrogenaze kinaze, ki zavira piruvat dehidrogenazo pri uporabi piruvata za gorivo cikla mitohondrijske trikarboksilne kisline (TCA). za prilagoditev celic, izpostavljenih hipoksičnim okoljem. Vendar pa ostaja nejasno, kako presnovno reprogramiranje ledvičnega tkiva s stabilizacijo HIF vpliva na patofiziologijoledvica bolezni. Diabetična ledvična bolezen (DKD) je glavni vzrok za končno odpoved ledvic. Sistemske presnovne motnje, kot sta hiperglikemija in dislipidemija, povzročajo spremembe ledvičnega metabolizma, kar vodi do ledvične disfunkcije, vključno z DKD. Prejšnje študije so pokazale povečan presnovni tok in kopičenje presnovkov cikla glukoze in TCA v tkivu kortikalne ledvice pri sladkorni bolezni, kar je lahko povezano z mitohondrijsko disfunkcijo in napredovanjem DKD. Domnevali smo, da bi stabilizatorji HIF lahko obrnili presnovne spremembe v diabetičnem kortikalnem tkivu ledvic, glede na to, da HIF kot adaptivni odziv na hipoksijo zmanjša presnovni tok v celicah za zatiranje porabe kisika. Tako smo z uporabo analiz transkriptoma in metaboloma izvedli študijo dokaza koncepta, da bi celovito razumeli, kako enarodustat (JTZ-951), peroralni stabilizator HIF, vpliva na spremembe ledvičnega metabolizma, ki se pojavijo v zgodnjih fazah DKD.
REZULTATI: Enarodustat inducira presnovno reprogramiranje iz cikla TCA v glikolizo v celicah proksimalnih tubulov ledvic
Ker je ledvična skorja v glavnem sestavljena iz proksimalnih tubulov, smo najprej preučili učinke enarodustata na presnovni tok celic proksimalnih tubulov ledvic in vitro. Najprej sta bila izvedena Mito Stress Test (Agilent Technologies, Inc., Santa Clara, CA) in Glycolytic Rate Assay (Agilent) v gojenih celicah HK-2, človeški epitelijski celični liniji proksimalnih tubulov (slika 1a). Enarodustat je znatno zmanjšal mitohondrijsko dihanje (cikel TCA) in povečal bazalno glikolizo, kar kaže na presnovno reprogramiranje iz cikla TCA v glikolizo (slika 1; dodatna slika S1). Izvedli smo tudi poskus z uporabo majhne moteče RNA (siRNA) za HIF-1 (slika 2; dodatna slika S2). Izločitev HIF-1 s siRNA je obrnila presnovne spremembe (bazalno dihanje, maksimalno dihanje, prosta dihalna kapaciteta in proizvodnja adenozin trifosfata [ATP]), ki jih je povzročil enarodustat, kar je pokazalo, da je presnovno reprogramiranje potekalo predvsem prek HIF-1 stabilizacijo (slika 2; dopolnilna slika S2). Aktivnost piruvat dehidrogenaze, pomemben dejavnik za celice, ki uporabljajo piruvat za gorivo cikla TCA, je prav tako zmanjšal enarodustat (slika 2f), kar je bilo združljivo s predhodno objavljenimi opažanji.


Osnovni podatki o diabetičnih podganah, ki jih povzroča streptozotocin
Iz rezultatov poskusov in vitro smo domnevali, da lahko stabilizatorji HIF ublažijo presnovne spremembe v kortikalnem tkivu ledvic pri sladkorni bolezni s presnovnim reprogramiranjem iz cikla TCA v glikolizo. Najprej smo izbrali diabetične podgane, povzročene s streptozotocinom (STZ), kot model za poskus dokazovanja koncepta, da bi preizkusili zgoraj omenjeno hipotezo. V tem modelu se sladkorna bolezen hitro inducira, kar nam omogoča opazovanje neto učinkov sladkorne bolezni in stabilizatorjev HIF na presnovo energije v ledvičnem tkivu v kratkem času. Protokol študije in osnovni podatki iz poskusov pri podganah s sladkorno boleznijo, povzročenih s STZ, so prikazani na sliki 3a. Podgane smo razdelili v 3 skupine: skupina A (lažna), skupina B (DKD) in skupina C (DKD þ enarodustat). Ravni glukoze v krvni plazmi, glikoziliranega hemoglobina HbA1c, trigliceridov in skupnega holesterola na dan 14 so bile v skupinah s sladkorno boleznijo znatno povišane v primerjavi s skupino A, medtem ko med skupinama B in C ni bilo pomembnih razlik (slika 3d–g). Čeprav se ravni kreatinina v plazmi med skupinami niso razlikovale, je bilo izločanje albumina z urinom znatno povečano in glomerulomegalija je bila opazna v skupini B v primerjavi s skupino A, enarodustat pa je te spremembe obrnil (slika 4). Ravni dušika sečnine v krvi so bile višje v skupinah s sladkorno boleznijo, kar odraža dehidracijo zaradi sladkorne bolezni. Če povzamemo, ledvice podgan, zdravljenih s STZ, v naši študiji predstavljajo zgodnje faze DKD. Analize transkriptoma in metaboloma so bile izvedene s kortikalnim tkivom ledvic teh podgan.

Analiza transkriptoma ledvičnega kortikalnega tkiva
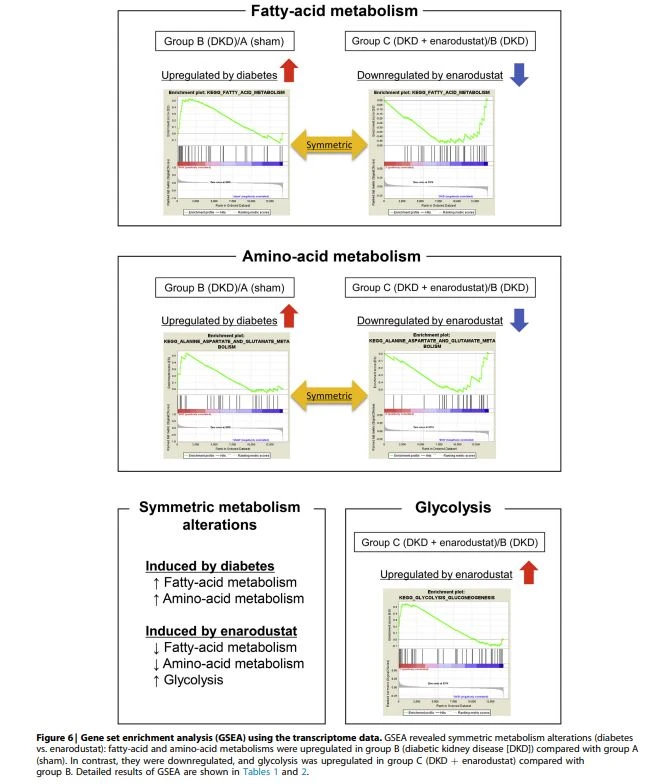
Rezultati analize transkriptoma ledvičnega kortikalnega tkiva so prikazani na slikah 5 in 6. Analiza glavnih komponent in analiza hierarhičnega združevanja v skupine sta pokazali, da so bile skupine A, B in C ločene v različne skupine (slika 5a in b). Diferencialno izraženi geni so bili izbrani z │log2 fold-change (FC) │ Večji ali enak 0.5 in vrednost Q < 0.05.="" analize="" genske="" ontologije="" in="" kanonične="" poti="" so="" pokazale,="" da="" so="" bili="" geni,="" povezani="" s="" presnovo="" maščobnih="" kislin,="" regulirani="" navzgor="" v="" skupini="" b="" v="" primerjavi="" s="" skupino="" a.="" nasprotno="" pa="" so="" bili="" geni,="" povezani="" s="" presnovo="" glukoze="" in="" odzivom="" na="" hipoksijo,="" vključno="" z="" omrežjem="" hif-1,="" navzgor="" regulirani="" v="" skupini="" c="" v="" primerjavi="" s="" skupino="" b="" (slika="" 5c="" in="" d).="" izvedli="" smo="" tudi="" analizo="" obogatitve="" genskega="" nabora="" (gsea)="" z="" uporabo="" transkriptomskih="" podatkov="" (slika="" 6,="" tabeli="" 1="" in="" 2).="" nabori="" genov="" za="" presnovo="" maščobnih="" kislin="" in="" aminokislin="" so="" bili="" regulirani="" navzgor="" v="" skupini="" b="" v="" primerjavi="" s="" skupino="" a="" (slika="" 6).="" v="" nasprotju="" s="" tem="" so="" bili="" ti="" genski="" nizi="" znižani="" in="" genski="" nizi="" presnove="" glukoze="" so="" bili="" regulirani="" navzgor="" v="" skupini="" c="" v="" primerjavi="" s="" skupino="" b,="" kar="" kaže,="" da="" je="" enarodustat="" obrnil="" presnovne="" spremembe,="" ki="" jih="" povzroča="" sladkorna="" bolezen="" (slika="" 6).="" poleg="" tega="" so="" bili="" nizi="" genov="" cikla="" tca="" znižani="" v="" skupini="" c="" v="" primerjavi="" s="" skupino="" b="" (tabela="" 2),="" kar="" je="" združljivo="" s="" pojmom="" presnovnega="" reprogramiranja,="" ki="" ga="" povzroča="" enarodustat,="" v="" proksimalnih="" tubulih,="" opaženega="" v="" naši="" študiji="" in="" vitro.="" če="" povzamemo,="" je="" enarodustat="" z="" vidika="" transkriptomije="" preprečil="" spremembe="" metabolizma="" ledvic="" pri="" sladkorni="">


Metabolomska analiza kortikalnega tkiva ledvic
Izmerili smo absolutne koncentracije 116 metabolitov, povezanih z energijo, v kortikalnem tkivu ledvic podgan (n =4, za vsako skupino), naključno izbranih iz vsake skupine (dodatna tabela S1; dodatna slika S3). Za oceno pomembnosti razredne diskriminacije je bila izvedena delna diskriminantna analiza najmanjših kvadratov (PLS-DA) (slika 7). Izvedli smo analizo obogatitve nabora metabolitov (MSEA) z uporabo presnovkov s PLS-DA variabilno oceno pomembnosti v projekciji (VIP) $ 1. Razlike v presnovi aminokislin, kot so glicin, serin, metionin, aspartat, glutamat, arginin, prolin, in b-alanina med skupinama A in B. Med skupinama B in C so opazili tudi razlike v presnovi aminokislin. Poleg tega so procesi presnove glukoze, kot sta glikoliza in glukoneogeneza, pokazali različne trende med skupinama B in C (slika 7).

Vizualizacija podatkov o transkriptomih in metabolomih na zemljevidu energetske presnovne poti
Vizualizirali smo podatke o transkriptomih in metabolomih za celovito razumevanje sprememb energetske presnove (slika 8). Ugotovljeno je bilo, da se presnovki glikolize in cikla TCA kopičijo v skupini B v primerjavi s skupino A, kar je lahko posledica čezmernega dotoka glukoze in povečane regulacije presnove maščobnih kislin pri DKD. Koncentracija aminokislin je bila zmanjšana v skupini B v primerjavi s skupino A, kar odraža povečano presnovo aminokislin (slika 8a). Nasprotno pa je kopičenje metabolitov glikolize zmanjšal enarodustat zaradi olajšanega poteka glikolize. Enarodustat je tudi obrnil spremembe presnovkov cikla TCA in aminokislin, ki jih povzroča sladkorna bolezen (slika 8b). Poleg tega je enarodustat ublažil kopičenje glutation disulfida (GSSG) v diabetičnem ledvičnem tkivu in tako pokazal višje razmerje glutation/GSSG, kar je nakazovalo, da je enarodustat ublažil oksidativni stres pri DKD (sliki 8a in b). Zmanjšanje oksidativnega stresa je bilo potrjeno z ravnmi markerja lipidne peroksidacije malondialdehida v kortikalnem tkivu ledvic: enarodustat je obrnil kopičenje malondialdehida v kortikalnem tkivu ledvic pri sladkorni bolezni (dodatna slika S4). Če povzamemo, integracija podatkov o transkriptomih in metabolomih je pokazala, da enarodustat preprečuje spremembe presnove ledvične energije, ki se pojavijo v zgodnjih fazah DKD.


Simetrične presnovne spremembe (diabetes proti enarodustatu) so potrjene v alternativnem modelu
Izvedli smo analizo transkriptoma pri diabetičnih miših, povzročenih z aloksanom, še enem živalskem modelu sladkorne bolezni, da bi potrdili naše ugotovitve v modelu podgan. Protokoli študije in osnovni podatki za mišji model so prikazani na sliki 9. Izločanje albumina z urinom je bilo znatno povečano v skupini B v primerjavi s skupino A, kar je obrnil enarodustat (slika 9d). Poleg tega smo uporabili obsežno 3-dimenzionalno analizo (jasni, neovirani koktajli slikanja možganov/telesa in računalniška analiza [CUBIC]–ledvica)16 za vizualizacijo glomerulov v ledvicah. Glomerulomegalija je bila opazna v skupini B v primerjavi s skupino A, ki jo je obrnil enarodustat (slika 9e). Transkriptomska analiza ledvičnega tkiva pri diabetičnih miših, povzročenih z aloksanom, je pokazala simetrične presnovne spremembe (diabetes v primerjavi z enarodustatom) na enak način kot pri modelu podgan s sladkorno boleznijo, povzročeno s STZ (slika 10): sladkorna bolezen je pospešila presnovo maščobnih kislin, medtem ko je bila glukoza metabolizem je pospešil enarodustat. Poleg tega je presnovo aminokislin sladkorna bolezen pospešila, enarodustat pa znižal. Tako je enarodustat preprečil spremembe v presnovi ledvične energije, ki so se pojavile v zgodnjih fazah DKD v modelu diabetične miši, ki jo povzroča aloksan, kot tudi v modelu diabetične podgane, ki jo povzroča STZ.


DISKUSIJA
V tej študiji smo dokazali, da enarodustat (JTZ-951), peroralni stabilizator HIF, preprečuje spremembe v presnovi ledvične energije, ki se pojavijo v zgodnjih fazah DKD pri podganjih in mišjih modelih sladkorne bolezni. Analize transkriptoma in metaboloma so pokazale simetrične presnovne spremembe v ledvičnem tkivu (sladkorna bolezen v primerjavi z enarodustatom): metabolizem maščobnih kislin in aminokislin je bil reguliran navzgor pri DKD, medtem ko je enarodustat znižal te poti in dodatno reguliral metabolizem glukoze (slike 5–10).
Ni povsem pojasnjeno, ali ima stabilizacija HIF zaščitne učinke na patofiziologijo DKD ali ne. Prejšnje študije so pokazale, da je diabetično ledvično tkivo izpostavljeno hipoksiji17 in izražanje HIF v diabetičnem ledvičnem tkivu ni zadostno pri odzivu na njihova hipoksična stanja, kar je delno posledica oksidativnega stresa.18 Stabilizacija HIF s kobaltovim kloridom je izboljšala status oksidativnega stresa in zmanjšala proteinurijo in tubulointersticijska poškodba pri DKD, ki jo povzroči STZ.19 Rezultati študij na živalih so tudi pokazali, da stabilizacija HIF ščiti pred razvojem debelosti,20 izboljša občutljivost za insulin20 in zniža raven holesterola v serumu.21 Ti rezultati kažejo na zaščitne učinke stabilizacije HIF pri razvoju DKD. V nasprotju s tem naj bi suprafiziološka stabilizacija HIF z von Hippel-Lindauovo delecijo povzročila ledvično fibrozo.22 Vloga stabilizacije HIF pri napredovanju DKD je lahko odvisna od konteksta glede na pleiotropne učinke HIF in obstoj različnih fenotipov DKD. Namen te študije je bil razjasniti neto učinke stabilizacije HIF na presnovo energije pri diabetičnih ledvicah. Prejšnja poročila so pokazala, da se pri DKD pojavijo spremembe energetske presnove. Sas et al.10 so pokazali povečan presnovni tok energije in kopičenje presnovkov glukoze v kortikalnem tkivu ledvic pri sladkorni bolezni, kar je lahko povezano z mitohondrijsko disfunkcijo. You et al.23 so poročali, da se je fumarat, metabolit cikla TCA, kopičil v ledvičnem tkivu diabetikov in je neposredno prispeval k napredovanju DKD. Prej smo pokazali, da se metaboliti cikla TCA kopičijo v diabetičnem ledvičnem tkivu, kar je bilo obrnjeno z inhibicijo natrijevega glukoznega kotransporterja 2 ali omejevanjem kalorij.11 Poleg tega so Qi et al.24 pokazali, da encimi v glikolitičnih poteh, vključno s piruvat kinazo M2 (PKM2), so bili povečani pri bolnikih s sladkorno boleznijo tipa 1 brez DKD v primerjavi z bolniki z DKD. Aktivacija PKM2 je obrnila kopičenje metabolitov glikolize in obnovila delovanje mitohondrijev, delno s povečanjem glikolitičnega toka. Ta prejšnja poročila kažejo, da lahko kopičenje presnovkov cikla glikolize in TCA vpliva na napredovanje DKD, ki ga je mogoče ublažiti z olajšano glikolizo, vključno s PKM2. aktiviranje. V naši študiji je stabilizacija HIF z enarodustatom obrnila spremembe energetske presnove in ublažila kopičenje metabolitov cikla glikolize in TCA v kortikalnem tkivu ledvic pri sladkorni bolezni (slika 8). Ekspresijo glikolitičnih encimov, vključno s PKM2, je prav tako reguliral enarodustat (dodatna slika S4B). Poleg tega je enarodustat ublažil kopičenje GSSG in povečal razmerje glutation/GSSG, kar nakazuje, da je enarodustat ublažil oksidativni stres pri DKD (slika 8). To zmanjšanje oksidativnega stresa, ki ga povzroča enarodustat, so potrdile tudi spremembe ravni malondialdehida v kortikalnem tkivu ledvic (dodatna slika S4A). Ti rezultati kažejo, da bi morala stabilizacija HIF imeti zaščitno vlogo pri patofiziologiji DKD vsaj s presnovnega vidika. Gotovo je, da ne moremo preučiti, ali ima presnovno reprogramiranje s stabilizacijo HIF neposredne učinke na napredovanje DKD, ker je morda nemogoče razbrati neto učinke presnovnih sprememb na ledvični izid zaradi pleiotropne vloge HIF. Vendar pa je v naši študiji blago izločanje albumina z urinom in ledvične patološke nenormalnosti (glomerulomegalija in zadebelitev glomerularne bazalne membrane), ki jih povzroča sladkorna bolezen, ublažil enarodustat v povezavi z normalizacijo presnove ledvične energije. Ekstrahirali smo gene, katerih spremembe izražanja so bile v korelaciji z ravnmi albumina v urinu (257 sond; 232 genov) iz podatkov mikromrež v modelu diabetične miši, ki jo povzroča aloksan, in izvedli analizo obogatitve poti (dodatna slika S5). Posledično so poti, povezane z mitohondrijsko membrano in respiratornim transportom elektronov, regulirane navzgor, povezane z ravnmi albumina v urinu, kar kaže, da je mitohondrijsko breme tesno povezano z izločanjem albumina v urinu. Tako obstaja možnost, da bi normalizacija metabolizma diabetičnega ledvičnega tkiva s stabilizatorji HIF zmanjšala mitohondrijsko obremenitev in ublažila napredovanje DKD. Naši podatki kažejo na patofiziologijo DKD z vidika presnove, kot sledi: Hiperglikemija ustvarja potrebo po energiji za reabsorpcijo glukoze v proksimalnih tubulih ledvic; tako se cikel TCA v mitohondrijih prisilno aktivira, da zadosti povpraševanju po energiji v zgodnjih fazah DKD (upregulacija metabolizma maščobnih kislin in aminokislin). In stabilizatorji HIF bi lahko ublažili to mitohondrijsko obremenitev s presnovnim reprogramiranjem iz cikla TCA v glikolizo (zmanjšana regulacija presnove maščobnih kislin in aminokislin ter uravnavanje glikolize), kar bi lahko imelo zaščitno vlogo pred napredovanjem DKD. Potrebne so nadaljnje študije, vključno z enocelično omiko, da se razjasni, kako mitohondrijsko breme v ledvičnem tkivu neposredno vpliva na patofiziologijo DKD. Drugo zanimivo vprašanje je, ali stabilizatorji HIF neposredno vplivajo na absorpcijo glukoze v proksimalnih tubulih. Naši podatki in vitro so pokazali, da enarodustat znatno zmanjša proizvodnjo ATP s presnovnim reprogramiranjem iz cikla TCA v glikolizo (sliki 1 in 2). Glede na to, da je ATP potreben za reabsorpcijo glukoze s kotransporterjem 2 natrija in glukoze, smo najprej domnevali, da bi lahko reabsorpcijo glukoze inaktiviral enarodustat. Vendar se ravni glukoze v urinu niso bistveno razlikovale med skupino B in skupino C v obeh živalskih modelih (dodatna slika S6). Verjetno je zmanjšanje proizvodnje ATP z enarodustatom veliko blažje v fiziološki situaciji v primerjavi z njegovim učinkom in vitro; tako stabilizacija HIF ne vpliva na absorpcijo glukoze prek kotransporterja 2 natrija in glukoze, vsaj v naših poskusih na živalih. Naša študija je imela 2 omejitvi. Najprej smo uporabili diabetične podgane, ki jih povzroča STZ, in diabetične miši, ki jih povzroča aloksan, kot modele DKD v zgodnji fazi in opazujemo kratkoročne učinke diabetičnih stanj. Vendar pa bi v kliničnem okolju stabilizatorje HIF dajali bolnikom z anemijo v pozni fazi DKD. Potrebnih je več študij, da bi razumeli učinek stabilizacije HIF na spremembe ledvičnega metabolizma v pozni fazi DKD. Drugič, študija ni imela zadostne statistične moči glede na disperzijo koncentracij metabolitov v podatkih metaboloma, medtem ko so imeli podatki o transkriptomu dovolj veliko statistično moč, da bi razjasnili celotno sliko presnove energije. Ker ni veliko metabolitov pokazalo pomembne razlike med skupinami, smo izvedli PLS-DA in izbrali metabolite z oceno PLS-DA VIP, večjo ali enako 1 za MSEA. Čeprav je težko navzkrižno preveriti presnovno spremembo samo z uporabo metabolomičnih podatkov, so bili rezultati analize metaboloma združljivi s transkriptomskimi podatki (sliki 7 in 8), kar zagotavlja dodatno podporo za opažene učinke sprememb transkriptoma na metabolizem ledvične energije. Skratka, enarodustat (JTZ-951), peroralni stabilizator HIF, preprečuje spremembe presnove ledvične energije v zgodnjih fazah DKD. Naša študija kaže, da lahko stabilizacija HIF služi kot potencialna intervencija, ki cilja na neregulirano presnovo ledvične energije pri DKD.

METODE
Mito Stres Test in Glycolytic Rate Assay
Celice HK-2 so bile posejane na 96-mikroploščo z vdolbinicami pri gostoti 1 x 10⁴celice/vdolbinico. Naslednji dan je bil presnovni tok izmerjen v realnem času z analizatorjem Seahorse XFe96 (Agilent) z uporabo Mito Stress Test Kit (103015-100; Agilent) ali Glycolytic Rate Assay Kit (103344- 100; Agilent). Koncentracije glukoze, piruvata in glutamina v gojiščih so bile 10 mmol/l, 1 mmol/l in 2 mmol/l.
transfekcijo siRNA
Knockdown HIF-1 je izvedel Stealth RNAi za človeški HIF1A (HSS104774 [#1] in HSS104775 [#2]; Thermo Fisher Scientific, Waltham, MA). Stealth RNAi siRNA Negative Control Med GC Duplex #2 (12935112; Thermo Fisher Scientific) je bila uporabljena kot negativna kontrola.
Western blotting
Primarna protitelesa, uporabljena za barvanje, so bila protitelesa proti humanemu HIF-1 (zajčje poliklonsko, 1:500; Novus Biologicals, Littleton, CO) in protitelo proti humanemu aktinu (zajčje poliklonsko, 1:1000; Sigma-Aldrich, St. Louis, MO). Sekundarno protitelo je bilo s peroksidazo konjugirano kozje protitelo IgG proti kuncem (170-6515, 1:5000; Bio-Rad Laboratories, Hercules, CA).
Poskusi na živalih
Podgane Crl: CD (Sprague Dawley) in miši Crl: CD1 (Inštitut za raziskave raka) so bile pridobljene od Charles River Laboratories Japan Inc. (Yokohama, Japonska). Vse poskuse je odobril institucionalni revizijski odbor Univerze v Tokiu (številka odobritve P17-110). Vsi postopki na živalih so bili izvedeni v skladu s smernicami Nacionalnega inštituta za zdravje (Vodnik za nego in uporabo laboratorijskih živali). Protokoli študije so prikazani na slikah 3 in 9.
Analiza transkriptoma
Celotno RNA iz ledvičnega kortikalnega tkiva smo izolirali s kompletom GenElute Mammalian Total RNA Miniprep Kit (RTN7{{10}}; Sigma-Aldrich). Celotno RNK (100 ng) smo označili s kompletom za označevanje Low Input Quick Amp (Agilent) in nato hibridizirali v SurePrint G3 Rat GE v2 8x60K Microarray (za podgano; Agilent) in SurePrint G3 Mouse GE v{{7 }}x60K Microarray (za miško) oz. Vse poskuse z mikromrežami je izvedlo podjetje DNA Chip Research Inc. (Tokio, Japonska). Neobdelani podatki so bili obdelani s paketom R limma v Bioconductor (http://www.bioconductor.org/) za izvedbo korekcije ozadja in normalizacije podatkov z metodo kvantilne normalizacije. Učinke serije je odstranil ComBat (Bioconductor) v poskusu s podganami. Diferencialno izraženi geni so bili določeni z│log2 FC│ večjim ali enakim 0,5 in vrednostjo Q < 0,05.="" analize="" genske="" ontologije="" in="" kanonične="" poti="" so="" bile="" izvedene="" z="" uporabo="" basespace="" correlation="" engine="" (illumina,="" san="" diego,="" ca).="" podatki="" mikromrež="" so="" bili="" deponirani="" v="" nacionalnem="" centru="" za="" biotehnološke="" informacije="" gene="" expression="" omnibus="" kot="" seriji="" gse131221="" (podgana)="" in="" gse139317="">
Analiza obogatitve genskega nabora
GSEA je računalniška metoda, ki ugotavlja, ali vnaprej definiran nabor genov kaže statistično značilne skladne razlike med dvema biološkima stanjema. GSEA je bila izvedena z uporabo GSEA v.3.0 (Broad Institute, Cambridge, MA). Poti s stopnjo lažnega odkritja < 0.25="" so="" veljale="" za="">

Analiza metaboloma
Meritve metaboloma je opravil Human Metabolome Technologies Inc. (Tsuruoka, Japonska). Koncentracije metabolitov so bile izračunane z normalizacijo površine vrha vsakega metabolita glede na površino notranjega standarda in z uporabo standardnih krivulj, ki so bile pridobljene iz 3-točkovnih kalibracij. Glejte tudi dopolnilne metode.
Analiza obogatitve niza metabolitov
Analiza metabolomičnih podatkov je bila izvedena z uporabo integrirane spletne platforme MetaboAnalyst 4.0. Izveden je bil PLS-DA in izračunani so bili povezani VIP rezultati. Za MSEA so bili uporabljeni metaboliti z oceno PLS-DA VIP, večjo ali enako 1.
Kvantifikacija glomerularnih območij pri ledvičnih patologijah
Naključno smo vzeli 3 patološke slike iz slike barvanja s periodično kislino–Schiff vsakega vzorca in izmerili vsako glomerularno področje z uporabo Fijija (distribucija ImageJ; National Institutes of Health, Bethesda, MD).
KUBIČNA-ledvica
Celovito 3-dimenzionalno slikanje glomerulov v ledvičnem tkivu je bilo izvedeno z uporabo CUBIC v skladu z našimi prejšnjimi članki. Na kratko, fiksne mišje ledvice smo potopili v CUBIC-L za delipidacijo in jih nato izpostavili imunofluorescenčnemu barvanju. Nazadnje je bil lomni količnik usklajen z namestitvijo vzorcev v CUBIC-R plus. Obsežne 3D-dimenzionalne slike iz prozornih ledvic so bile pridobljene s po meri izdelano fluorescenčno mikroskopijo s svetlobnimi ploščami (MVX10-LS; Olympus, Tokio, Japonska). Primarno protitelo, uporabljeno za barvanje, je bilo protitelo proti podocinu (kunčje poliklonsko, 1:100, P0372; Sigma-Aldrich). Sekundarno protitelo je bilo Alexa Flour 555- konjugirano oslovsko protikunčje IgG (1:100, A-31572; Invitrogen, Thermo Fisher Scientific).
Statistična analiza
Za večkratne primerjave je bila uporabljena {{0}}analiza variance, ki so ji sledili post hoc testi več primerjav Tukey, če je bilo primerno. Vse statistične analize so bile izvedene s programsko opremo GraphPad Prism 7 (GraphPad Software, San Diego, CA). P <0,05 je="" veljal="" za="" statistično="" značilen.="" podatki="" so="" predstavljeni="" kot="" povprečje="" ±="">
RAZKRITJE
MN je prejel honorarje, svetovalne honorarje ali financiranje raziskav od KyowaHakko-Kirin, Akebia, Astellas, Chugai, GlaxoSmithKline, Japan Tobacco Inc. (JT), Torii, Tanabe-Mitsubishi, Daiichi-Sankyo, Takeda, Ono, Bayer, Boehringer Ingelheim in Alexion. TT je prejel raziskovalno štipendijo JT. Enarodustat (JTZ-951) je zagotovil JT, Tokio, Japonska. EAS in HRU sta izumitelja patentov v lasti RIKEN-a. Del te študije je bil narejen v sodelovanju s korporacijo Olympus in prijazno programsko opremo, ki jo podpira Bitplane. Drugi avtor je izjavil, da ni konkurenčnih interesov.
ZAHVALA
Hvaležni smo dr. Shuhei Yao in dr. Shinji Tanaka za dragocene razprave. Prav tako se zahvaljujemo dr. Tsuyoshi Inoue, dr. Satoru Fukuda in gospe Kahoru Amitani za njihovo tehnično podporo. To delo je bilo delno izvedeno ob podpori Znanstvenega centra za izotope Univerze v Tokiu. To delo je podprl raziskovalni sodelavec Japonskega združenja za promocijo znanosti (JSPS) (dotacija JSPS KAKENHI 19J11928 za SH), dotacija za znanstvene raziskave (B) (dotacija JSPS KAKENHI 18H02824 do MN ), nepovratna sredstva za znanstvene raziskave (C) (dotacija JSPS KAKENHI 17K09688 za TT) in nepovratna sredstva za znanstvene raziskave na inovativnih področjih (dotacija KAKENHI 26111003 za MN).