Široko razširjeno valovanje sinhronizira človeško kortikalno aktivnost med spanjem, budnostjo in priklicem spomina 2. del
Oct 17, 2023
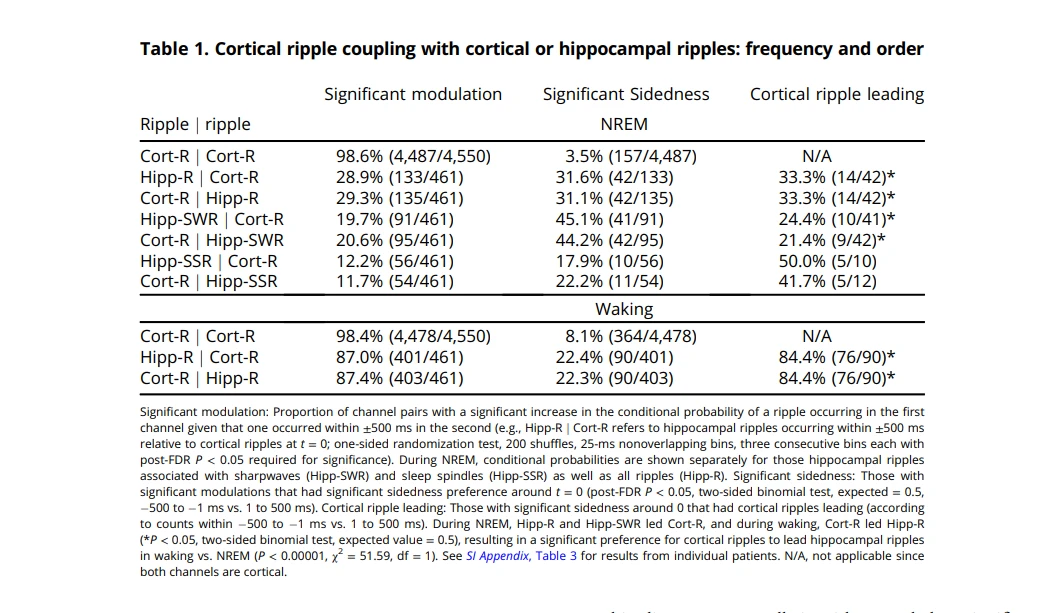
Hipokampalno ostrovalovno valovanje vodi do kortikalnih valov med NREM.
Medtem ko zgornji rezultati kažejo, da je kortikalno valovanje pred hipokampalnim valovanjem med budnostjo, se zdi, da je njihov vrstni red med NREM mešana slika, za katero smo domnevali, da je odvisna od tega, ali se hipokampalno valovanje pojavi v kontekstu ostrega vala ali vretena (2, 21, 22). Ugotovili smo, da je hipokampalno valovanje z ostrimi valovi bistveno pred kortikalnim valovanjem za ~250 ms (dodatek SI, slika S4A; P=0.002, dvostranski binomski test, pričakovana vrednost=0.5), medtem ko valovanje vretena je bilo sočasno (Dodatek SI, slika S4B; P=1).
Razmerje med valovanjem hipokampusa in spominom je področje velikega zanimanja. Hipokampus je ena najpomembnejših regij v možganih. Nahaja se znotraj temporalnega režnja in je tesno povezan s kognitivnimi funkcijami, kot sta učenje in spomin. Hipokampalno valovanje je posebna vrsta možganske aktivnosti, ki naj bi bila povezana s kodiranjem spomina in integracijo informacij. V zadnjih letih so si raziskovalci neomajno prizadevali poglobljeno raziskati notranji mehanizem hipokampalnih valov in spomina.
Raziskave kažejo, da je hipokampalno valovanje električna aktivnost posebnih celic v hipokampusu, ki se običajno pojavi, ko so možgani v mirnem stanju. Proces ustvarjanja hipokampalnih valov zahteva medsebojno delovanje več dejavnikov, vključno z regulacijo genov, prenosom živčnih signalov itd. Ko hipokampalni valovi nastanejo, pomagajo krepiti povezane procese kodiranja spomina.
Študija je nekoč pokazala, da je moč hipokampalnih valov v pozitivni korelaciji z močjo spomina. Ko so možgani v mirnem stanju, nevroni v hipokampusu proizvajajo specifično električno aktivnost, ki ima "odbojno" obliko, ki pomaga preoblikovati in shraniti spomine v možganih. Hkrati lahko hipokampalno valovanje izboljša tudi sinhronizacijo nevronov v možganih, dodatno krepitev povezav in prenosa informacij med različnimi nevroni.
Na podlagi zgornjih rezultatov raziskave lahko sklepamo, da je hipokampalno valovanje ključnega pomena za kodiranje in shranjevanje možganskega spomina. S povečanjem aktivnosti v hipokampusu in krepitvijo povezav med povezanimi nevroni lahko izboljšamo shranjevanje in priklic spominov v možganih. Hkrati pa lahko z uravnoteženo prehrano, zmerno vadbo in ohranjanjem duševnega zdravja ustvarimo boljše okolje za možgane in spodbujamo nastajanje hipokampalnih valov ter tako dosežemo boljše spominske učinke.
Če povzamemo, razmerje med valovanjem hipokampusa in spominom je področje intenzivnih raziskav. S poglobljenim preučevanjem njegovega notranjega mehanizma lahko raziščemo učinkovitejše metode za izboljšanje spomina in s tem prinesemo več koristi osebnemu učenju in razvoju kariere. Aktivno ukrepajmo skupaj, da ustvarimo boljše okolje za svoje možgane in postanemo boljša različica sebe! Vidi se, da moramo izboljšati spomin, in Cistanche deserticola lahko bistveno izboljša spomin, saj lahko Cistanche deserticola uravnava tudi ravnovesje nevrotransmiterjev, kot je povečanje ravni acetilholina in rastnih faktorjev. Te snovi so bistvenega pomena za spomin in učenje. Poleg tega lahko meso izboljša pretok krvi in spodbuja dostavo kisika, kar lahko zagotovi, da možgani prejmejo dovolj hranilnih snovi in energije, s čimer se izboljša vitalnost in vzdržljivost možganov.
Kliknite poznajte dodatke za povečanje spomina
Ti rezultati potrjujejo prejšnji predlog, da ostrovalovno in vretenasto valovanje zaporedno prispevata h konsolidaciji. Na splošno, kot predvidevajo modeli hipokampo-kortikalne interakcije za spomin, hipokampalno valovanje običajno vodi kortikalno med spanjem, kortikalno pa običajno vodi hipokampalno med budnostjo.
Sočasno pojavljanje kortikalnih valov je olajšano z aktivacijo na več mestih.
Pri vsakem bolniku smo ugotovili, da ko se dve kortikalni mesti združita, se jima lahko pridruži eno ali več dodatnih mest (Dodatek SI, slika S5). Da bi preizkusili, ali je valovanje dveh kortikalnih mest povzročilo večjo verjetnost za valovanje tudi na drugih mestih, smo izračunali χ2 test razmerij za vse možne skupine treh kortikalnih kanalov pod ničelno hipotezo, da sočasno pojavljanje kanalov A in B ni povezano s so- pojav A in C. Ugotovili smo znatno povečano sočasno pojavljanje tretjega mesta pri povprečno 14,1 % trojčkov med NREM in 38,8 % med budnostjo (rezultati za posamezne bolnike, navedeni v dodatku SIA, tabela 4, χ2 test razmerij, FDR- popravljene vrednosti P v tripletih kanalčkov pri bolnikih).
In further support that rippling is facilitated through activation across multiple sites, we found that the number of ripple co-occurrences relative to chance increased with the number of locations rippling (>2) (slika 2D). Povečanje je bilo izrazito, tako da se je opaženo število sočasnih pojavov glede na izhodiščno vrednost 25 % vseh kanalov povečalo za faktor ~104 med prebujanjem in ~5 × 10³ med NREM. Tako se zdi, da valovanje povzroči več valovanja, kar kaže na možnost samoojačitvenega širjenja.
Kortikalno valovanje se močno pojavlja na razdalji.
Vezava z valovanjem zahteva, da se pojavljajo sočasno v razširjenih kortikalnih območjih. Primerjali smo pogojne verjetnosti sočasnega pojava kortiko-kortikalnega valovanja (tj. verjetnost valovanja na enem kortikalnem mestu glede na valovanje na drugem kortikalnem mestu, kar zahteva prekrivanje večje od ali enako 25- ms) z razdaljami pretoka bele snovi med kortikalna mesta. Poenostavljene razdalje so bile izračunane z uporabo 360 parcel atlasa HCP-MMP1.0 (23), kot je bilo ugotovljeno z verjetnostno difuzijsko magnetnoresonančno trakografijo (24), in populacijskimi povprečji (25).
Ugotovili smo, da se verjetnost kortiko-kortikalnega valovanja ni zmanjšala z razdaljo trakta vlaken med NREM (slika 2E, r=0.04, P=0.22, linearni mešani učinki s pacientom kot naključnim učinkom), temveč prej je bila ohranjena do razdalje 25- cm, čez režnjeve in med hemisferami. Med prebujanjem so se verjetnosti valovanja ohranile tudi v tem razponu razdalje, čeprav s šibko, a pomembno negativno linearno povezavo (slika 2F, r=0 .10, P=4 × 10⁵). Glej dodatek SI, sliki S6A in B za posamezne bolnike.
Valovanje v vseh kortikalnih predelih se pojavlja sočasno z valovanjem hipokampusa.
Prej so poročali, da se valovanje pojavi med parahipokampalnim girusom in 16,4 % stranskih temporalnih elektrod, vendar le 3,3 % rolandičnih (8), kar morda odraža anatomsko lokacijo hipokampusa na vrhu kortikalne hierarhije (26). Vendar smo ugotovili, da se hipokampalno valovanje pojavlja sočasno z valovanjem v vseh kortikalnih območjih s približno enakimi stopnjami tako pri NREM kot pri budnosti.
Če upoštevamo indeks mielinizacije kot merilo položaja v kortikalni hierarhiji [asociacijska območja so manj mielinizirana (27)], smo ugotovili šibek, a pomemben učinek med NREM, ne pa tudi budnosti. Med NREM je bilo hipokampo-kortikalno sočasno pojavljanje v pozitivni korelaciji z mielinizacijo (SI Dodatek, slika S7; r=0.15, P=0.01), kar kaže, da je nekoliko večja verjetnost, da se valovanje v hipokampusu pojavi sočasno z valovanjem v primarnih kortikalnih območjih.
Pred odpoklicem se pojavi kortiko-kortikalno in hipokampo-kortikalno valovanje.
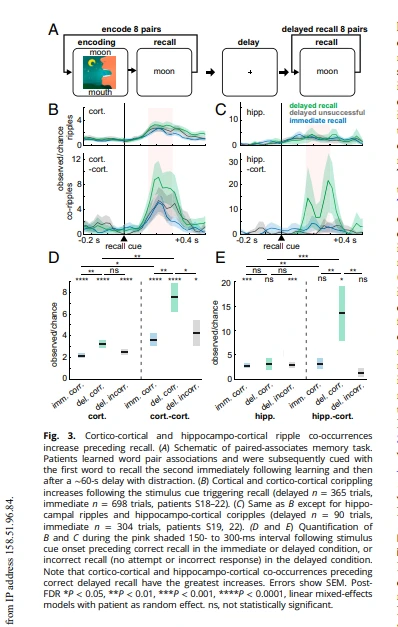
. Če valovanje v različnih kortikalnih regijah veže elemente spomina, bi pričakovali, da se kortikalno valovanje pojavi sočasno pred odpoklicem, kar zahteva, da se ti elementi soaktivirajo. Da bi preizkusili to hipotezo, smo analizirali podatke o spominskih nalogah seznanjenih sodelavcev pri petih bolnikih s SEEG (slika 3A in dodatek SI, tabeli 1 in 5). Pred odloženim ponovnim priklicem je prišlo do znatnega povečanja pojava kortikalnih valov (P=1 × 10¹¹; linearni modeli mešanih učinkov s pacientom kot naključnim učinkom) za 330 % možnosti (izračunano na podlagi poskusov, torej možnosti je bilo določeno ločeno za takojšnji in zapozneli priklic) in še večje povečanje sočasnega pojava kortiko-kortikalnih valov za 758 % v primerjavi z naključjem (P=0.0004; sl. 3B–E).
Poleg tega so bile modulacije sočasnega pojavljanja kortikalnih valov (P=0.002) in kortiko-kortikalnih (P=0.002) in hipokampo-kortikalnih (P=0.008) večje pred delayedvs. takojšnji priklic, ki je imel enake dražljaje in odzive. Končno je bilo kortiko-kortikalno (P=0.04) in hipokampo-kortikalno (P=0.004) valovanje okrepljeno pred pravilnim v primerjavi z nepravilnim odloženim priklicem , kar pa ni veljalo za kortikalno (P=0.08) ali hipokampalno (P=0.94) valovanje na splošno.
Zlasti zakasnjen, vendar ne takojšen odpoklic seznanjenih sodelavcev je resno prizadet zaradi poškodbe hipokampusa (12). Ti podatki kažejo povečano valovanje med kortikalnimi mesti ter med hipokampusom in skorjo med od hipokampusa odvisnim iskanjem novih kombinacij prej nepovezanih predmetov. Ta ugotovitev podpira hipotezo, da lahko hipokampo-kortikalno in kortikokortikalno valovanje prispeva k rekonstrukciji deklarativnih spominov pri ljudeh.
Ker bi stanje možganov lahko vplivalo na zmogljivost priklica, smo preizkusili, ali obstaja razlika v analitični amplitudi alfa (7 do 13 Hz) med pravilnimi in nepravilnimi odgovori. Nismo našli pomembne razlike v povprečni analitični amplitudi alfa v kortikalnih kanalih znotraj okna ±1- s okoli odzivnih časov za korekture. nepravilno za katerega koli od petih pacientov s podatki o nalogah v paru (P=0.24 do 0.64 in t=0.36 do 1,6, enostranski dvovzorčni test, FDR-korigirane vrednosti P za več bolnikov).
Fazno zaklepanje kortikalnih valov v razširjenih regijah.
Predpostavlja se, da so fazno zaklenjena nihanja na razširjenih lokacijah podlaga za integracijo ("vezavo") različnih komponent dogodkov po kortikalni površini. Za vsak par kanalov smo izračunali vrednost faznega zaklepanja (PLV), merilo skladnosti faz od 70- do 100-Hz med mesti, neodvisno od amplitude (28), v vseh njihovih dogodkih valovanja v NREM ali budnosti. Upoštevajte, da se doslednost meri med različnimi valovi, pri vsakem 1- ms binu glede na središče valovanja, ne znotraj valov.
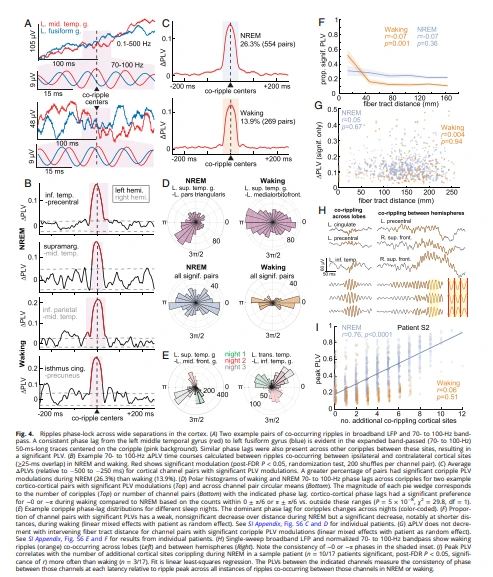
Ugotovili smo znatno PLV sočasnih valov med vsemi vzorčenimi kortikalnimi regijami, vključno med hemisferami, v obeh stanjih (sl. 4A–C). Med NREM je bilo več parov kanalov s pomembnimi PLV modulacijami kot med budnostjo (sl. 4C in dodatek SI, Tabela 6; P po FDR < 0.05, randomizacijski test; nepomembni rezultati v dodatku SI, sliki S8A in B).
Primer dosledne faze med dvema kortikalnima lokacijama prek dveh valov je prikazan na sliki 4A. Za vsak par kanalov je bil PLV izmerjen pri vsaki zakasnitvi glede na središče njihovega valovanja (slika 4B), ti časovni poteki pa so bili povprečeni za vse pomembne pare kanalov (slika 4C). Povečan PLV je trajal celotno obdobje, ko so mesta valovila in se je nenadoma dvignila od izhodišča. Časovni potek PLV je bil izjemno podoben parom kanalov. Med spanjem je imelo 2.106/2.275 parov kortiko-kortikalnih kanalov več kot 40 sočasnih valov, potrebnih za zanesljivo oceno PLV. Od tega jih je 26,3 % (554/2.106) imelo pomembne modulacije PLV.
Med prebujanjem je imelo 1.939/2.275 več kot 40 sočasnih valov in 13,9 % (269/1.939) teh je imelo pomembne modulacije PLV (Dodatek SI, tabela 6). Kot smo ugotovili za sočasne pojave (Dodatek SI, slika S3A ), so bili kortikokortikalni vrhovi PLV valovanja v kanalskih parih pozitivno korelirani med NREM in budnostjo (SIAdodatek, slika S3B; r=0.20, P=4 × 10²², pomen r). Če povzamemo, je bilo ugotovljeno, da imajo oddaljeni pari mest v korteksu dosledne faze med valovanjem tako v NREM kot v budnosti.
Fazno zaklenjeno valovanje ima širši razpon faznega zamika NREM v primerjavi z budnostjo in se lahko spreminja med nočmi.
Ko smo dokazali pomembno fazno zaklepanje med mesti kortikalnih valov, smo ocenili porazdelitev srednjih krožnih faznih kotov med pari mest. Ugotovili smo, da so imeli med NREM povprečni fazni koti za različne pare kortikalnih mest, ki so imeli znatno fazno zaklepanje valovanja, precej enakomerno porazdelitev od {{0}} do 2π radianov (slika 4D, spodaj levo). Vendar pa so med prebujanjem zaostanki faze valovanja med pari bili približno ~0 ali ~π (slika 4D, spodaj desno).
Ta razlika je bila pomembna (P {{0}} × 108, χ2=29.8, df=1; z uporabo štetja znotraj 0 ± π/6 ali π ± π/6 v primerjavi z zunaj teh območij za NREM v primerjavi z budnostjo). Ta ugotovitev kaže na večjo težnjo k zamiku ničelne faze med prebujanjem. Spodaj podajamo dokaze, da sta zaostanka ~0 in ~π funkcionalno enakovredna in sta lahko posledica variabilnosti v fini postavitvi stika elektrode glede na kortikalne plasti. To je lahko povezano z večjo nagnjenostjo valovanja k spajanju pri skoraj ničelni zakasnitvi med bujenjem (slika 2A).
Preizkusili smo tudi, ali so se fazni zamiki med NREM spreminjali čez noč. Za vsakega bolnika z več nočmi spanja (n {{0}}) smo primerjali fazne zamike valovanja med vsemi možnimi pari noči spanja znotraj parov kanalov, ki so imeli pomembne modulacije PLV. Ugotovili smo, da je imelo 51,8 % (1256/2426) takih parov bistveno različne fazne zamike med nočmi (slika 4E; P po FDR <0,05, Watson–Williamsov test; najmanj 30 valov na noč na par kanalov). Te razlike v faznih zamikih valovanja med določenimi kortikalnimi mesti kažejo, da lahko sodelujejo v različnih omrežjih ponoči, kot se lahko zgodi na primer pri reaktivaciji kortikalnih predstavitev, povezanih z različnimi spomini. Podobne pojave so opazili pri obsežnih kortikalnih modelih (29).
Ripples Phase-Lock Robustno na dolge razdalje.
Ker deklarativni spomini značilno združujejo različne elemente, ki so kodirani na razširjenih kortikalnih lokacijah v obeh hemisferah, mora vsak nevrofiziološki proces, ki podpira njihovo kodiranje, konsolidacijo ali priklic, prav tako delovati na teh razdaljah. Glede na to, da se kortikokortikalni valovi z razdaljo le malo zmanjšajo (preizkušeno do 200 mm; sliki 2E in F), smo domnevali, da se fazno zaklepanje kortikokortikalnih valov prav tako ne zmanjšuje z razdaljo.
Pravzaprav smo ugotovili, da tako kot sočasna pojavnost valovanja delež kanalskih parov s pomembnimi modulacijami PLV (slika 4F; r=0.07, P=0.36, linearni mešani učinki pri pacientu kot naključni učinek) in velikost teh modulacij PLV (slika 4G; r=0.05, P=0.67) se ni bistveno zmanjšala z vmesno razdaljo vlaken med NREM. Med prebujanjem je prišlo do znatnega zmanjšanja deleža parov kanalov z znatnimi modulacijami PLV z razdaljo, zlasti na krajših razdaljah (slika 4F; r=0.07, P=0.001), vendar brez zmanjšanja v obsegu pomembnih kanalskih parov modulacij PLV z razdaljo (slika 4G; r=0.004, P=0.94). Tako lahko fiziološko delovanje, ki ga podpira valovanje, zajame celotno kortikalno površino.
Fazno zaklepanje se poveča z več kortikalnimi mesti Corippling.
Valovanje je pogosto fazno zaklenjeno na več mestih, tudi med poloblama (slika 4H), in kot je opisano zgoraj, smo ugotovili, da je zaradi združevanja dveh mest bolj verjetno, da se zvija tretje mesto. Te ugotovitve postavljajo vprašanje, ali aktiviranje razširjenih valovitih omrežij olajša večjo omrežno sinhronizacijo. Ugotovili smo močno pozitivno linearno korelacijo med številom valovitih mest in najvišjo amplitudo faznega zaklepanja kortiko-kortikalnega valovanja (slika 4I).
Ti rezultati so bili ponovno ugotovljeni, ko je bil uporabljen ΔPLV (najvišji PLVminus izhodiščni PLV) namesto najvišjega PLV (ΔPLV:n {{0}}/17 bolnikov, značilnih med NREM, n=1/17 pomembnih med prebujanjem, P po FDR < 0.05, pomen r). Da bi preverili, ali je do večjega združevanja preprosto prišlo zaradi večje amplitude valovanja, smo izmerili povprečno analitično amplitudo od 70- do 100-Hz za zgibe in ugotovili, da je imelo samo 2/17 bolnikov v NREM in 0/17 bolnikov v budnem stanju pomembne korelacije (P po FDR < 0,05, signifikantnost r) in obe pomembni korelaciji sta bili negativni, kar dokazuje, da več korupcije ni bilo posledica večje amplitude. Skratka, sočasno pojavljanje valov spodbuja nadaljnje sopojavljanje, kar izboljša fazno zaklepanje.
Kortiko-kortikalne motnje imajo dosledne fazne zamike v zaporednih ciklih.
Domnevali smo, da bi bil par mest učinkovito "fazno zaklenjen" v zaporednih ciklih valovanja, ker je frekvenca valovanja ~90 Hz tako podobna med valovanjem in lokacijami. Za vsako valovanje iz vsakega para kortiko-kortikalnih kanalov smo izračunali PLV čez zamike med obema valovanjema z uporabo njunih petih vrhov, ki so najbližje časovnemu središču valovanja, in ugotovili pomembno fazno zaklepanje znotraj valovanja za 98,3 % od 807213 valovanje med NREM in 98,0 % od 1.348.696 valov med bujenjem (P < 0,05; randomizacijski test, n=1,000 naključnih faznih zamikov, popravek FDR prek valovanja). Tako je fazno zaklepanje znotraj valovanja prisotno v skoraj vseh kortiko-kortikalnih valovih.
Hipokampo-kortikalni pari Redko, če sploh kdaj, fazni zaklep.
Kortiko-kortikalno fazno zaklepanje bi lahko poganjali preko mreže sklopljenih kortikalnih oscilatorjev, osrednjega pogonskega mehanizma ali kombinacije. Ker se hippokampalno valovanje močno pojavlja skupaj s kortikalnim valovanjem (slika 2B), smo raziskali, ali hipokampus poganja fazno zaklepanje valov v skorji s testiranjem, ali obstaja fazno zaklepanje med hipokampokortikalnimi valovi.
Za pare hipokampokorje med spanjem je imelo 277/461 več kot 40 sočasnih valov in 1,4 % (4/277) teh je imelo pomembne modulacije PLV. Med prebujanjem je imelo 333/461 parov hipokampokortikalnih kanalov več kot 40 sočasnih valov in 0,3 % (1/333) od teh je imelo pomembno modulacijo PLV (Dodatek SI, slika S8C–F in tabela S6).
Preiskava trajektorij elektrod je pokazala, da so bili stiki hipokampusa s pomembnimi PLV s kortikalnimi mesti verjetno locirani v subikularnem kompleksu in ne v samem hipokampusu, kar je skladno z ugotovitvijo pri miših, da širjenje valov od hipokampusa do retrosplenialne skorje poteka preko subikuluma (10). Tako je malo verjetno, da fazno zaklepanje kortiko-kortikalnega valovanja poganjajo običajni vnosi iz hipokampalnega valovanja, kar podpira hipotezo, da je fazno zaklepanje kortiko-kortikalnega valovanja poganjano intrakortikalno.
Kortikalno valovanje je povezano s povečanim in fazno moduliranim proženjem ene enote.
Da bi valovanje imelo vlogo pri komunikaciji in integraciji informacij med oddaljenimi kortikalnimi mesti, je potrebno, da se nevronski akcijski potenciali usklajujejo s pojavom in fazo valovanja. Analizirali smo posnetke mikromrež iz zrnatih/supragranularnih plasti človeške lateralne temporalne skorje pri treh bolnikih (Dodatek SI, tabela 7) med NREM, da bi preizkusili, ali valovi modulirajo lokalno enkratno enoto.
Odkrili smo konice in jih razvrstili v domnevne piramidne (PY) in internevronske (IN) enote na podlagi oblik valovnih oblik in časovnih značilnosti konic v skladu s predhodno uveljavljenimi metodami (30) in preverili, da imajo enote velika razmerja med signalom in šumom (PY: 9,1 ± 3,4; IN: 5,2 ± 2,9), so imeli minimalni intervali med konicami, ki so bili<3 ms (PY: 0.2 ± 0.3%; IN: 0.3 ± 0.6%; low percentages indicate minimal contamination by other units), and were well-isolated from one another based on the projection test (31) (PY: 95.4 ± 86.0 SD; IN: 82.8 ± 83.4 SD).
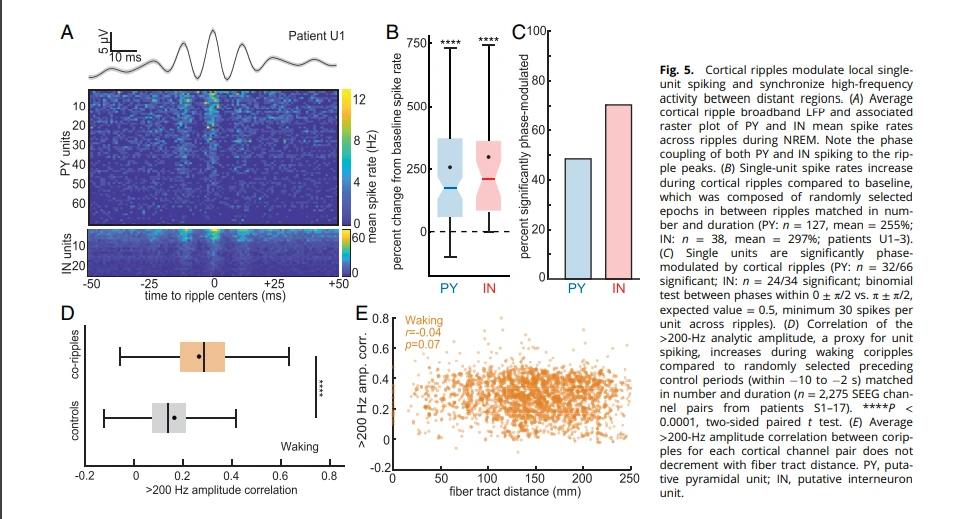
Zaznali smo tudi valovanje, ki so ga zabeležili mikrokontakti niza, pri čemer je bila povprečna valovna oblika konic vsake enote odšteta v časih konic na kanalu enote, da bi preprečili kontaminacijo LFP s konicami enote. Ugotovili smo, da je kortikalno valovanje povezano s povečanim proženjem ene enote (sliki 5A in B). PY je imel 255-odstotno povečanje, IN pa 297-odstotno povečanje stopenj skokov med valovanjem v primerjavi z izhodiščem (naključno izbrana obdobja med valovi, ki so se po številu in trajanju ujemala z valovi).
Poleg tega je bilo proženje enote močno fazno modulirano z valovanjem (slika 5A), pri čemer je 49 % (32/66) PY in 71 % (24/34) IN imelo pomembne 70- do 100- Hz fazne modulacije med lokalnimi valovi (slika 5C; post-FDR P < 0.05, binomski test med fazami znotraj 0 ± π/2 v primerjavi s π ± π/2, pričakovana vrednost {{ 17}}.5, najmanj 30 enot spikesper prek valov).
Ker je tako valovanje enote povezano z lokalno fazo valovanja in ker so faze valovanja sinhronizirane na dolge razdalje, ti podatki kažejo, da valovanje usklajuje čas skoka enote med širokimi ločitvami v skorji, kar bi lahko omogočilo izbiro faz, zaznavanje naključij, obdelavo ponovnega vnosa in konice. časovno odvisna plastičnost. Ti osnovni nevrofiziološki procesi bi vplivali na kooperativno izbiro celičnih sklopov med kortikalnimi področji, kar je bistvo vezave.
Corippling poveča domnevno korelacijo enota-aktivnost med oddaljenimi kortikalnimi mesti.
Naše ugotovitve, da so valovi pogosto fazno zaklenjeni na oddaljenih mestih in da je proženje enote fazno zaklenjeno na lokalne valove skupaj, pomenijo, da je proženje enot povezano tudi z oddaljenimi lokacijami. Tega nismo mogli neposredno preizkusiti, ker nismo opravili snemanj z mikroelektrodami enot na več lokacijah, ki so bile ločene z več kot ~5 mm.
Rather, as an indirect test, we used >200-Hz analitična amplituda iz posnetkov SEEG kot približek za streljanje enote (32). Med budnostjo, vendar ne NREM, je bila ta mera znatno bolj povezana, ko so kortikalna mesta valovila v primerjavi s tistimi, ko niso bila (slika 5D, P=8 × 10303, dvostranski parni t-test). Korelacija med valovitimi mesti se ni bistveno zmanjšala z večanjem razdalje med mesti (slika 5E).
Kot je opisano zgoraj, je fazni zamik med kanali blizu 0 ali π, zlasti med bujenjem. To bi lahko pomenilo, da kopanje včasih predstavlja stanje zavrte komunikacije ali preprosto, da so naše bipolarne izpeljave SEEG imele spremenljive odnose z lokalnimi dipoli, ki ustvarjajo valovanje. Dejansko je 3- mm bipolarna ločitev kontaktov SEEG dovolj velika za snemanje iz več valovitih dipolov z različnimi usmeritvami. Pri podganah generatorji valovanja zavzemajo ~1 mm2 kortikalne površine (5), celični generatorji pa se nahajajo v več plasteh, ločenih z ~1 mm (10).
Da bi preizkusili te hipoteze, smo primerjali korelacije analitičnih amplitud {{0}}Hz visokoprepustnih signalov med mesti, ko so imela mesta valovite fazne zamike 0 ± π/6 proti. π ± π/6 (povprečje znotraj teh razponov za vsak par kanalov). Za NREM ali budnost ni bilo ugotovljene pomembne razlike (NREM: P=0.07; budnost: P=0.17; dvostranski parni t-test, n=2, 275 parov kanalov) , kar nakazuje, da so zamiki blizu 0 in π funkcionalno enakovredni, kot bi pričakovali, če so posledica majhnih razlik v lokaciji elektrod glede na kortikalno lamino.
For more information:1950477648nn@gmail.com