Letni pregled farmakologije in toksikologije, 2. del
Jul 28, 2023
Izomerni flavoni imajo 2-arilne substituente na 4H-kromen-4-one jedru in te spojine se nadalje presnavljajo v različne fitoestrogene. Baicalein se nahaja v zelišču, ki se uporablja v tradicionalni kitajski medicini, in je s preprostim 2-fenilnim substituentom deloval kot antagonist GPER za zmanjšanje E2-inducirane migracije, adhezije in invazije v celicah raka dojke (66) in zatrl E2-inducirano celično invazijo ter izražanje in aktivacijo matrične metaloproteinaze-9 (67).
Izoflavoni so naravne spojine, ki jih najdemo v številni zelenjavi in sadju, kot so kumare, čebula, šparglji in paradižniki. V zadnjih letih je vse več znanstvenih študij pokazalo, da so izoflavoni zelo koristna hranila, ki lahko pomagajo izboljšati človeško imunost.
Prvič, izoflavoni so antioksidanti, ki lahko nevtralizirajo proste radikale, zavirajo aktivnost prostih radikalov in ščitijo celice pred oksidativnimi poškodbami. Ta antioksidativni učinek lahko učinkovito izboljša človeško imunost in zmanjša pojavnost bolezni.
Drugič, izomerizirani flavonoidi imajo tudi učinek zaviranja vnetja. Raziskave so pokazale, da je vnetje vzrok številnih bolezni, vključno s srčnimi boleznimi, možgansko kapjo, sladkorno boleznijo in rakom. Ker lahko izoflavoni zavirajo vnetja, igrajo pomembno vlogo pri varovanju zdravja ljudi.
Končno lahko izoflavoni spodbujajo celično diferenciacijo in proliferacijo, izboljšajo delovanje imunskega sistema in pomagajo telesu proizvesti več protiteles in imunskih celic, s čimer krepijo imunost telesa.
Na splošno so izoflavoni zelo pomembno hranilo, ki lahko izboljša človeško imunost in zmanjša pojavnost bolezni. Zato moramo biti pozorni na razumno kombinacijo strukture prehrane in povečati živila, ki vsebujejo izoflavone, da ohranimo zdravo telesno in duševno stanje. S tega vidika moramo izboljšati našo imuniteto. Cistanche lahko znatno izboljša imunost, saj ima Cistanche tudi protivirusne in protirakave učinke, ki lahko okrepijo sposobnost imunskega sistema za boj in izboljšajo odpornost telesa.
Kliknite zdravstvene koristi cistanche
Polifenolni katehini, kot je (-)-epikatehin, se pojavljajo v zelenem čaju, kakavu in nekaterih vrstah sadja in so pritegnili veliko pozornosti glede svojih potencialnih koristi za zdravje. (-)-Epikatehin je aktiviral signalne poti GPER za vazodilatacijo podobno kot G-1 (68) in spodbudil mitohondrijsko biogenezo v mišjih skeletnih mišicah (69). Sintetični propargilični etrski derivati (-)-epikatehina so ohranili aktivnost na poti eNOS/NO in, ko so bili imobilizirani, delovali kot afinitetna kolona za odstranjevanje GPER iz proteinskih izvlečkov endotelijskih celic, kar dodatno potrjuje (-)-epikatehin kot ligand GPER (70).
Antocianini so raznolik razred močno obarvanih flavonoidov, ki jih najdemo v sadju in rdečem vinu in so bili zanimivi zaradi svoje hranilne vrednosti in možnih koristi pri boleznih ožilja. Aglikonski delfinidin in glikozilat delfinidin 3-glukozid sta bila ekvipotentna pri izvabljanju hitrih z NO posredovanih vazodilatatorskih odzivov pri podganjih samcih in ta odziv je posnemal tkivno perfuzijo z G-1 ali E2 in znatno zmanjšan z zdravljenjem z G36, kar je vključevalo GPER v to pot (71).
Zearalenon je fenolni makrolakton, ki ga proizvajajo mikotoksini v zrnju in žitih in se presnavlja v epimerne alkohole - in -zearalenon. Ker so te spojine zelo razširjene, jih uživajo živali in ljudje, kar vzbuja zaskrbljenost glede estrogenih učinkov na reproduktivni sistem, druge toksičnosti in potencialne vloge pri razvoju hormonsko odvisnih rakov. Zearalenon je agonist GPER in izpostavljenost v prašičjih hipofiznih celicah in žlezah je povzročila povečano izražanje GPER messenger RNA, ne pa tudi ER/, skupaj z aktivacijo poti GPER/PKC/p38 za uravnavanje mikroRNA miR-7, ki cilja gena FOS, kar vodi do zaviranja sinteze in izločanja folikle stimulirajočega hormona in povzroči reproduktivne okvare (72, 73). V celičnih linijah raka debelega črevesa, ki se običajno ne štejejo za hormonsko občutljive, je zearalenon spodbujal celično rast, neodvisno od sidranja, in napredovanje celičnega cikla, ki ga je zaviral G15, prek MAPK in efektorja poti Hippo YAP1, kar je zagotovilo mehanizem za spodbujanje rasti raka debelega črevesa ( 74).
Več strukturnih razredov sintetičnih kemikalij, ki povzročajo motnje endokrinega sistema, so ligandi za GPER, zato je bil razvit pristop farmakološkega presejanja za razlikovanje aktivnosti agonista/antagonista GPER. Ta metoda je uporabila slikanje živih celic za spremljanje sprememb v morfologiji celic človeških fibroblastov MR5C kot odziv na G-1 in G15 za oceno aktivnosti GPER (75). Bisfenoli se proizvajajo industrijsko in so vključeni v številne potrošniške izdelke v velikem obsegu po vsem svetu in so eden najpomembnejših razredov spojin, ki povzročajo endokrine motnje. Ti analogi na splošno kažejo višje relativne vezavne afinitete za GPER kot ER in sprožijo ekstranuklearne signalne poti pri nizkih odmerkih, ki izpodbijajo njihovo klasično označevanje kot šibki estrogeni (76, 77). Analog fluoriranega bisfenola BPAF je imel devetkrat večjo afiniteto za GPER kot matična spojina, določeno s fluorescenčnim kompetitivnim testom vezave v celicah SKBR3, ki izražajo GPER, in negenomske učinke, posredovane z GPER, so opazili pri koncentracijah 10-nM (78) . Ker proizvajalci prehajajo na alternative brez BPA z analogi, kot je sulfon BPS, pomisleki glede estrogene aktivnosti ostajajo in zahtevajo nadaljnje študije v širokem kontekstu vključenih receptorjev ter večjo skrbnost za spremljanje in oceno tveganja.
Sintetične spojine, ki ciljajo na GPER
Odkritje, da bi GPER lahko igral vlogo pri dejavnostih estrogenih spojin (19–21, 79), je ugotovilo kritično potrebo po novih farmakoloških orodjih za razlikovanje med aktivnostmi ER / in GPER. Izzivi pridobivanja struktur z atomsko ločljivostjo za membransko vezane GPCR-je in odsotnost takšne strukture GPER so bile pomembne ovire za pristope, ki temeljijo na strukturi in skušajo oblikovati in optimizirati spojine, usmerjene v GPER. Kombinacija virtualnih in biomolekularnih presejalnih pristopov je privedla do odkritja prvega in do danes najbolj raziskanega agonista GPER, G-1 (80) (slika 3).
Ta strategija je uporabila računalniški zaslon 10000-členske knjižnice spojin na ligandu za strukturno podobnost z E2 za razvrščanje spojin za konkurenčne vezavne teste s pretočno citometrijo na celici, ki je uporabljal fluorescenčno sintetično E2- sondo za razlikovanje spojin, ki kažejo selektivno vezavo GPER v zvezi s podtipi jedrskih receptorjev (80). Kasnejša uporaba sintetične medicinske kemije za študije strukture in delovanja tetrahidro-3hciklopenta[c]kinolinskega ogrodja je privedla do identifikacije prvega antagonista GPER G15 (81) in izboljšanega analoga G36 (82). Aktivnost, selektivnost in odvisnost GPER od G-1 so bile dokazane v več ER-negativnih celičnih linijah, vključno s SKBR3 (rak dojke) (19), Hec50 (rak endometrija) (83) in MCF10A (normalna dojka epitel) (84) celic, pri čemer uporabljajo pristope knockdown majhne moteče RNA (32, 83, 84), kot tudi v več sistemih pri GPER knockout (KO) miših (85).
Do danes aktivnosti teh spojin, kjer so jih pregledali, niso bile prisotne v celicah in miših brez GPER (85), razen poročanih učinkov na tubulin pri visokih koncentracijah (3–50 μM) (86, 87). Te validirane GPER-selektivne spojine serije G so komercialno dostopne kot racemne zmesi in so omogočile uporabo pristopov molekularne biologije in široko paleto študij in vitro in in vivo za karakterizacijo novih ligandov in razlikovanje GPER od ER / na več poteh v različnih vrste celic, tkiv in organov. (S, R, R)-enantiomer G-1 [1-((3aS,4R,9bR)-4-(6-bromobenzo[d][1,3) ]dioksol5-il)-3a,4,5,9b-tetrahidro-3H-ciklopenta[c]kinolin-8-il)etan-1-on] je bilo pridobljeno s kiralno (high-performance tekočinsko) kromatografijo in je napredovalo kot prvo preiskovalno novo zdravilo, usmerjeno na GPER (IND), LNS8801 (88), ki je vstopilo v klinična preskušanja na ljudeh (https://kliničnitrials.gov/ct2/show/ NCT04130516).
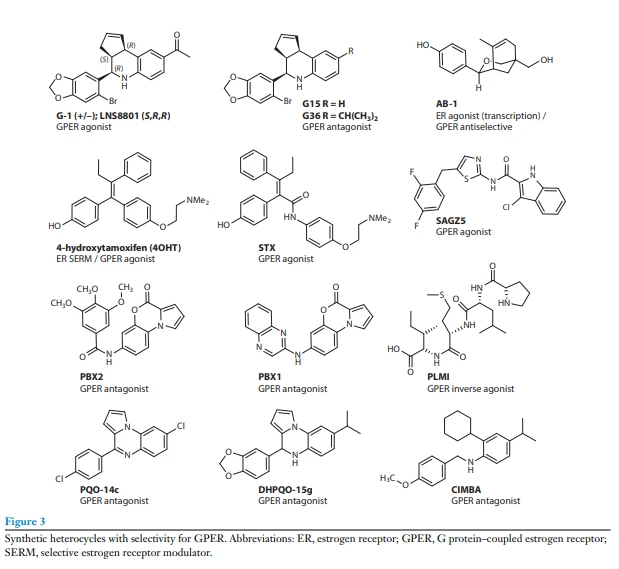
Pristop, uporabljen za identifikacijo spojin serije G, je vodil tudi do odkritja oksabiciklične spojine AB-1, ki kaže edinstven in inverzen profil selektivnosti v primerjavi s spojinami serije G, pri čemer se ne veže na aktivnost GPER ali ne vpliva nanjo. medtem ko deluje kot agonist ER/klasičnih genomskih odzivov/transkripcije (in antagonizira hitre neklasične signalne poti, ki jih posreduje ER) (89). Ta selektivnost je še posebej opazna glede na to, da številne spojine, ki so usmerjene na ER, medsebojno delujejo tudi z GPER; na primer, selektivni modulator estrogenskih receptorjev (SERM) (4-hidroksi)tamoksifen (aktivni metabolit tamoksifena, uporabljen v poskusih in vitro) je močan agonist GPER (20, 21, 90). Strukturno soroden difenilakrilamidni tamoksifen-raloksifenski hibrid, STX, je prav tako aktiviral GPER v hipokampalnih klonskih celicah mHippoE-18 (37, 91).
Veliko truda je bilo osredotočenega na razvoj računalniških modelov homologije za GPER, ki so omogočili študije molekularnega priklopa, simulacije molekularne dinamike in pristope virtualnega presejanja, kot je opisano v nedavnih pregledih (92–101). Medtem ko poglobljena pokritost te teme presega obseg tega pregleda in je karakterizacija mnogih spojin še vedno nepopolna, je poučno pregledati izbrane nove ligande, ki so bili identificirani, in povzeti spremljajoče vpoglede v zvezi z vezavo in delovanjem.
Strukturni pomen ogrodja G-1 kot farmakofora je bil ugotovljen z več sintetičnimi programi, ki ustvarjajo derivate, ki ohranjajo vezavo GPER. Ciklopentenska skupina je bila nasičena in nadomeščena s tetrahidrofuransko in tetrahidropiranilno skupino (98, 102, 103). Metilenska skupina je bila nadomeščena s karboksilatnimi in karboksamidnimi funkcionalnimi skupinami (97, 104), biarilni derivati 5-bromobenzo[1,3]dioksolne skupine pa so bili pripravljeni s Suzuki–Miyaura navzkrižnim spajanjem (94). V drugem primeru je fluorescentno barvilo borondipirometen difluorid (BODIPY), konjugirano na položaj 6- skupine 5-bromobenzo[1,3]dioksola, posnemalo strukturo G-1 in pokazalo konkurenčni ligand vezava na GPER s 3H-E2 in G15 v celicah SKBR3 (105). Z amidom vezan indol-tiazol SAGZ5 je bil identificiran z virtualnim pregledovanjem 3D modela farmakoforja in ugotovljeno je bilo, da je agonist GPER, ki je aktiviral adenilat ciklazo in poznejšo tvorbo cAMP v celicah HL60 z vrednostmi EC50, podobnimi tistim za G-1 ( 106). Priklopni model je predlagal, da se SAGZ5 veže na istem hidrofobnem mestu, kot je modelirano za G-1.
Identificiranih je bilo več dodatnih antagonistov GPER z nekaterimi strukturnimi podobnostmi z G15 in G36. Pirolobenzoksazinonski spojini PBX1 in PBX2 sta bili identificirani kot liganda GPER s kompetitivnimi študijami vezave in sta pri koncentracijah 10- μM zavirali celično proliferacijo SKBR3 in celično migracijo fibroblastov, povezanih z rakom, inducirano s 100 nM E2 in G-1 (107 ). Ugotovljene so bile dodatne strukturno sorodne spojine, kot sta pirolo[1,2-a]kinoksalin in dihidopirolo[1,2-a]kinoksalin (PQO-14c in DHPQO-15g). kot antagonisti GPER z uporabo homološkega modela, ki temelji na kemokinskem receptorju CXCR4, in s praktičnim presejanjem za spojine z načini vezave, podobnimi G-seriji spojin (108). Te spojine so povzročile celično smrt v celicah MCF7 in SKBR3, ki izražajo GPER, s strukturnimi analogi, ki kažejo različne učinke na izražanje p53 in p21. Strukturno sorodni analogi tega ogrodja so zavirali celično proliferacijo v celicah TNBC, pri čemer so opazili povečano aktivnost dihidropirolo derivata (109).
Pristop homološkega modeliranja je bil uporabljen za načrtovanje benzilnega anilina CIMBA, ki je zaviral G-1-inducirano mobilizacijo kalcija (110). Strukturo CIMBA lahko obravnavamo kot aciklični analog G36, ki zagotavlja povečano konformacijsko prožnost in topnost v vodi v primerjavi s kinolinskim ogrodjem. Intraperitonealno injiciranje CIMBA v modelu miši z ovariektomijo je preprečilo holesterolne žolčne kamne, ki jih povzroča E2-, na način, ki je odvisen od odmerka. Ti rezultati spodbujajo nadaljnje študije antagonistov GPER za razvoj novih zdravil za zdravljenje bolezni žolčnih kamnov pri ženskah.

Peptid, ki ustreza ostankom 295–311 iz tečajne regije/domene AF2 ER (imenovan ER 17p), je povzročil apoptozo v celicah raka dojke in spodbudil regresijo v modelu ksenotransplantata tumorja z negativnim ER (111). Ta peptid naj bi bil inverzni agonist GPER, ki zmanjšuje fosforilacijo EGFR in ERK1/2, zmanjšuje ekspresijo c-fos in inducira od proteasomov odvisno znižano regulacijo GPER (112). Ta aktivnost je bila ponovljena s kratkim sintetičnim tetrapeptidom PLMI, ki temelji na koncu N večjega peptida, in medtem ko se na prvi pogled ti peptidi zdijo presenetljivo drugačni od drugih heterocikličnih ogrodij, so študije molekularnega priklopa pokazale korelacijo v predvideni vezavi GPER mesta spojine heterocikličnega antagonista PBX-1 (112).

TERAPEVTSKE PRILOŽNOSTI ZA GPER-SELEKTIVNE LIGANDE Rak
GPER se izraža v širokem razponu človeških rakov, kar kaže na možne vloge pri diagnozi, prognozi ali usmerjanju njegove dejavnosti ali izražanja kot terapevtskih posegov. Ekspresija GPER je bila dokumentirana pri človeških rakih (ali celičnih linijah), kot so dojke, endometrij, jajčniki, prostata, trebušna slinavka, ščitnica, debelo črevo, pljuča, ledvice in melanom, med mnogimi drugimi (pregledano v 113). V številnih rakavih celičnih linijah, vključno z rakavimi celičnimi linijami (84), endometrijem (114), ščitnico (115) in jajčniki (116), G-1 spodbuja proliferacijo in povezane signalne poti (slika 4). Vendar pa so poročali tudi o zaviranju proliferacije pri celičnih linijah dojke (117), melanoma (118), prostate (119, 120), trebušne slinavke (121) in drugih rakavih celičnih linijah. V modelu mišjega ksenotransplantata raka prostate, ki je vključeval na androgene občutljivega in na kastracijo odpornega raka, je G-1 zaviral napredovanje raka, vendar le pri bolezni, odporni na kastracijo (119, 120). Razlike v mehanizmih celične proliferacije in uporabljenih koncentracijah G-1 lahko pojasnijo te in vitro razlike.
Pri ljudeh izražanje GPER korelira s slabimi rezultati pri raku dojke (122–124), endometrija (125) in raka jajčnikov (126). Ekspresija GPER je povečana pri metastazah raka dojke v primerjavi z ustreznimi primarnimi tumorji (127, 128), vendar, zanimivo, samo pri ženskah, zdravljenih s tamoksifenom (128). Ekspresija GPER je tudi v korelaciji z zmanjšano inhibicijo rasti tumorja pri primarnih ER-/GPER-pozitivnih tumorjih dojke, zdravljenih s tamoksifenom, v primerjavi z inhibicijo aromataze. Te razlike ni pri primarnih ER-pozitivnih tumorjih dojke, ki ne izražajo GPER (123, 124). Vloga globalnega izražanja GPER je bila ovrednotena v MMTV-PyMT mišjem modelu spontane tumorigeneze dojke. V primerjavi z mišmi divjega tipa so miši GPER KO dale manjše tumorje z zmanjšanimi metastazami, kar nakazuje, da ima in vivo GPER protumorigeno funkcijo (129). Ali je ta ugotovitev posledica izražanja v tumorskih celicah ali stromalnih celicah (npr. imunskih celicah ali fibroblastih), ostaja neznanka.
Učinki (4-hidroksi)tamoksifena na raka dojke (celice) kot agonista GPER so bili obsežno raziskani in so kompleksni. Celice MCF7, odporne proti tamoksifenu, so proliferirale kot odziv na tamoksifen po poti, odvisni od GPER (127, 130), ki je bila blokirana bodisi s knockdown GPER bodisi z zdravljenjem z G15 (81, 127). Tamoksifen je izzval citoplazmatsko translokacijo proapoptotičnega transkripcijskega faktorja Foxo3, kar lahko nato prispeva k mehanizmom odpornosti (32, 90). Tamoksifen je preko GPER povzročil tudi migracijo celic raka dojke (131) in povečal izražanje aromataze v celicah, odpornih na tamoksifen (132). In vivo so ksenografti MCF7, odporni na tamoksifen, po zdravljenju z G15 ponovno pridobili občutljivost na tamoksifen (127). G15 je senzibiliziral celice raka dojke na doksorubicin z zaviranjem epitelno-mezenhimskega prehoda (133). Nazadnje je G-1 (kot tudi tamoksifen in fulvestrant) povečal ubijanje tako ER-negativnih kot ER-pozitivnih celic raka dojke, posredovano s celicami naravnimi ubijalkami, kar kaže na še eno možno vlogo GPER pri imunski regulaciji (134).
In vivo so učinki agonistov in antagonistov GPER zapleteni zaradi razširjenega izražanja GPER onkraj tumorskih celic, vključno s tumorsko povezanimi imunskimi in stromalnimi celicami (kot so fibroblasti, adipociti in vaskularne celice). Protivnetni učinki GPER in G-1 verjetno vplivajo na nastanek in zgodnje napredovanje raka, kar dokazuje pospešena vnetna tumorigeneza jeter pri miših s pomanjkanjem GPER (135). Ekspresija GPER v fibroblastih, povezanih z rakom dojke, prav tako nakazuje vlogo pri napredovanju raka (136–138), kjer je spodbujala migracijo in invazijo rakavih celic (139–141). Adipociti v tkivih, bogatih z maščobami, kot so dojke in debeli (142), prav tako prispevajo k kancerogenezi več vrst raka (143). Adipociti izražajo aromatazo, kar povzroči povečane lokalne ravni estrogena, pa tudi veliko adipokinov in na splošno provnetnih citokinov in hormonov, ki lahko spodbujajo nastanek tumorjev. Ker G-1 zmanjšuje debelost in presnovno disfunkcijo (144), vnetje (113, 145) in s kemoterapijo povzročeno kardiotoksičnost (146), lahko z različnimi mehanizmi zmanjša incidenco ali izboljša rezultate pri raku dojke in drugih vrstah raka.
GPER ima tudi pomembno vlogo pri številnih drugih vrstah raka. G-1 je zmanjšal tumorigenezo v jetrih, delno z zaviranjem vnetja in fibroze (135). Nasprotno pa se je pri nedrobnoceličnem pljučnem raku obremenitev s tumorjem povečala pri zdravljenju z E2 ali G-1 in zmanjšala pri zdravljenju z G15 (147, 148). V celicah melanoma je G-1 (kot tudi tamoksifen) zaviral proliferacijo in vitro (149), v kombinaciji s terapijo protiteles proti PD-1 pa je G-1 primarno povzročilo zmanjšanje tumorja rast, kar bistveno izboljša preživetje miši, ki nosijo melanom (118). Kombinacija G-1 s terapijo zaviranja imunske kontrolne točke je prav tako pokazala učinkovitost pri modelih raka trebušne slinavke (121). Te kombinirane terapije so privedle do imunskega spomina, zaščite pred ponovnim izzivom tumorja, kar kaže na široke učinke na tumor in imunske celice (118). Te študije so vodile do odobritve IND za G-1 pri raku in kasnejšega začetka prve faze I kliničnega preskušanja G-1 leta 2019 (https://clinicaltrials.gov/ct2/show/NCT04130516).
Kardiovaskularni sistem
Estrogeni igrajo pomembno vlogo pri uravnavanju delovanja srca in ožilja, zato njihovi receptorji predstavljajo potencialne tarče za terapevtske posege pri številnih boleznih srca in ožilja, vključno z miokardnim infarktom (koronarna srčna bolezen), aterosklerozo, arterijsko in pljučno arterijsko hipertenzijo ter srčnim popuščanjem. Vloga(e) estrogena je ponazorjena z manjšo incidenco hipertenzije in bolezni koronarnih arterij pri ženskah pred menopavzo v primerjavi z moškimi enake starosti in znatnim povečanjem obeh bolezni po menopavzi (150, 151). Vloga GPER pri uravnavanju srčno-žilnega delovanja in bolezni je bila obsežno dokazana z uporabo G-1 in vključuje uravnavanje krvnega tlaka, angiogenezo, delovanje miokarda in vnetje (152).
G-1 je tako kot E2 sprožil vazorelaksacijo v veliki meri s proizvodnjo dušikovega oksida v več žilah (izvora glodalcev, prašičev in človeka) in akutno znižal krvni tlak pri miših, učinek, ki ga pri miših GPER KO ni bilo (31, 71, 153–155). Pri hipertenziji, odvisni od soli, z zgodnjo diastolično disfunkcijo (srčno popuščanje z ohranjenim iztisnim deležem) je ob uporabi podgane mRen2.Lewis kronično zdravljenje z G-1 izboljšalo sprostitev miokarda pri ženskah z nepoškodovanim jajčnikom in samicah z ovariektomijo ter zmanjšalo hipertrofijo in steno srčnih miocitov debeline, v odsotnosti očitnih sprememb krvnega tlaka (156, 157). Podobni terapevtski učinki G-1 so se pojavili pri starih podganah (158) in hipertenzivnih podganah, ki jih povzroča AngII (159).
Zdravljenje z G-1 (2 tedna pri starosti 14 mesecev) je tudi odpravilo hipertenzijo pri podganjih samicah z intrauterino omejeno rastjo (tj. z nizko porodno težo), ki se pojavi v starejši starosti (160). Poleg učinkov agonizma GPER prek G-1 je G36 preprečil z AngII povzročeno hipertenzijo pri miših z edinstvenim mehanizmom, ki je bil posledica znižane regulacije Nox1 s kasnejšim pomanjkanjem proizvodnje reaktivnih kisikovih vrst, ki so vključene v vazokonstrikcijo, povzročeno z AngII, in torej hipertenzija (161). Pri podganjem modelu diabetične kardiomiopatije so bili povprečni arterijski tlak, srčna teža ter indeksi aterogenega in srčno-žilnega tveganja izboljšani z zdravljenjem z E2 in G-1, pri čemer je zdravilne učinke E2 zaviral G15 (162). Poleg arterijske hipertenzije je bil G-1 učinkovit pri zdravljenju pljučne arterijske hipertenzije, pri čemer je odpravljal funkcionalne aberacije srca in skeletnih mišic pri ovariektomiranih samicah (163) in samcih (164) miši.
Ateroskleroza, ki lahko vodi do bolezni koronarnih arterij, je posledica povišanih ravni lipidov v krvi in kroničnega vnetnega stanja. G-1 je zaščitil pred razvojem ateroskleroze z več učinki tako v dietno povzročenih (165) kot v genetskih modelih (166). Prvič, G-1 je znižal raven holesterola v plazmi (glejte spodaj) (144). Drugič, G-1 je povzročil diferenciacijo in zaviral proliferacijo gladkih mišičnih celic koronarnih arterij (167). Tretjič, G-1 je zmanjšal vnetje v z dieto povzročenem modelu ateroskleroze pri miših (165). V skladu s protivnetno vlogo GPER so miši GPER KO pokazale povečano kopičenje vnetnih celic in ateroskleroze pri miših z nepoškodovanimi jajčniki in miših z ovariektomijo (165). Četrtič, G-1 in E2 inducirata proizvodnjo dušikovega oksida v človeških endotelijskih celicah (oboje zavira G36) (165) in poveča vazodilatacijo (166). Endotelna disfunkcija in zmanjšana proizvodnja NO sta značilnost ateroskleroze in vaskularne bolezni (151, 168).
Endokrinologija in metabolizem
Presnovna homeostaza je različno urejena pri moških in ženskah (169, 170), pri čemer imajo ženske v predmenopavzi manjšo pojavnost debelosti in sladkorne bolezni v primerjavi z moškimi enake starosti. Ti zaščitni učinki, ki so verjetno posledica estrogena, se po menopavzi izgubijo (171, 172). Ta spolna razlika, kot tudi učinki pomanjkanja estrogena, so prisotni tudi pri miših (173, 174). Nadomestno zdravljenje z estrogenom pri ženskah po menopavzi in pri miših z ovariektomijo lahko ublaži povečanje telesne mase in s tem povezane škodljive presnovne učinke (173–176).
Izražanje GPER je povezano s telesno težo, porabo energije in homeostazo glukoze. To dokazuje dejstvo, da so miši GPER KO pokazale povečano telesno težo in debelost (tako v visceralnih kot podkožnih depojih), dislipidemijo ter insulinsko rezistenco in intoleranco za glukozo (153, 177–180). Da GPER modulira bazalni metabolizem, je bilo sklenjeno iz dejstva, da niso opazili nobenih sprememb niti v dnevnem vnosu hrane v stanju dinamičnega ravnovesja niti v lokomotorni aktivnosti, vendar se je poraba energije pri miših GPER KO zmanjšala, skladno z opažanjem zmanjšane ekspresije termogenih genov v rjavem maščobnem tkivu ločevanje proteina 1 in 3-adrenergičnega receptorja (177, 179). Zanimivo je, da čeprav ni bilo splošne razlike v vnosu hrane, so samice miši GPER KO pokazale manjšo občutljivost na kratkotrajno inhibicijo leptina in holecistokinina s hranjenjem (179). V skladu s tem učinkom je zdravljenje podgan z ovariektomijo G-1 povzročilo akutno prehodno zmanjšanje vnosa hrane (181).
Uporaba modelov debelosti prek pomanjkanja estrogena (tj. ovariektomija) ali diete z visoko vsebnostjo maščob (HFD) je kronično zdravljenje z G-1 po povečanju telesne mase privedlo do izgube teže in maščobnega tkiva, izboljšanih ravni lipidov v obtoku in povečanih poraba energije brez sprememb v porabi hrane ali gibanju (144). Podobno niso opazili nobenih sprememb v pusto masi ali kostni gostoti/vsebnosti mineralov. V belem in rjavem maščobnem tkivu ter skeletnih mišicah je zdravljenje z G-1 povečalo izražanje genov, vključenih v mitohondrijsko biogenezo in oksidacijo maščobnih kislin, hkrati pa zmanjšalo izražanje številnih genov, ki sodelujejo pri vnetju, hipoksiji in angiogenezi ( 144). Pomembno je, kot smo že opazili (165), da zdravljenje z G-1 miši z ovariektomijo ni povzročilo imbibicije maternice (144), kot se to zgodi pri dodajanju estrogena (182).
Miši GPER KO so prav tako pokazale višjo glukozo v plazmi in oslabljeno občutljivost za inzulin ter toleranco za glukozo ter okvarjeno izločanje inzulina, stimulirano z glukozo in estrogenom (177–179). V modelu sladkorne bolezni tipa 1, ki ga povzroča streptozotocin, so samice miši GPER KO pokazale zmanjšano vsebnost pankreasnega inzulina in celic trebušne slinavke ter višjo glukozo v krvi (183). Poleg spodbujanja preživetja otočkov (183) je GPER posredoval pri izločanju insulina v izoliranih otočkih kot odziv na E2 in G-1, ki sta bila oba zmanjšana z inhibicijo GPER z G15 ali v otočkih miši GPER KO (184). Nazadnje so se miši divjega tipa z ovariektomijo, vendar ne GPER KO, odzvale na akutno in kronično zdravljenje z estrogenom z izboljšano homeostazo glukoze, kar je dodatno razkrilo vlogo GPER pri delovanju estrogena in vivo (178, 179).
Zgoraj opisani modeli so povzročili tudi presnovno disfunkcijo, vključno z insulinsko rezistenco in intoleranco za glukozo. Zdravljenje z G-1 je privedlo tudi do izboljšav v homeostazi glukoze, kot so razkrili testi tolerance za glukozo in inzulin, ter zmanjšali koncentracije glukoze in inzulina na tešče (144). Z uporabo ovariektomije, streptozotocina in HFD za ustvarjanje podganjega modela hude postmenopavzalne sladkorne bolezni tipa 2 je ena študija pokazala, da zdravljenje z estrogenom in G-1 izboljša glukozo v krvi na tešče in HOMA-IR (ocena homeostatskega modela za inzulinsko rezistenco), z estrogenskimi zdravilnimi učinki, ki jih obrne G15 (162). Da GPER deluje tudi za povečanje izločanja inzulina pri ljudeh, je bilo dokazano na otočkih trebušne slinavke, izoliranih pri bolnikih s sladkorno boleznijo tipa 2, kjer se je po stimulaciji z G-1 izločanje insulina, stimulirano z glukozo, povečalo, medtem ko se je izločanje glukagona in somatostatina zmanjšalo (185, 186). .
Delovanje GPER-selektivnih ligandov v drugih sistemih
GPER se izraža v koži in ima v njej več vlog. Vloga GPER pri melanogenezi, ki jo povzroča estrogen, kaže, da bi modulatorji GPER lahko našli aplikacije pri kloazmi in drugih motnjah pigmentacije kože (187, 188). Pri okužbi kože in mehkih tkiv, ki je posledica Staphylococcus aureus, je G-1 zmanjšal dermonekrozo, verjetno z zmanjšanim skupnim kopičenjem nevtrofilcev, in povečal očistek bakterij v odsotnosti neposrednih baktericidnih učinkov (189). Opažena razlika med spoloma in vloga estrogena pri celjenju ran (190, 191), skupaj z zmanjšanim celjenjem pri miših GPER KO (R. Ko, O. Davidson, K. Ahmed, R. Clark, J. Brandenburg et al., neobjavljeni rezultati), predlagajo dodatne možnosti za zdravljenje z agonistom GPER pri kožnih obolenjih in celjenju ran.
Kar zadeva hepatobiliarni sistem, ima estrogen več funkcij v jetrih in žolčniku, saj ščiti delovanje jeter in zmanjšuje steatohepatitis, hkrati pa spodbuja nastajanje žolčnih kamnov. Estrogen in genistein sta delno prek GPER zaščitila hepatocite pred mitohondrijsko disfunkcijo in kopičenjem trigliceridov (192). DHEA je s pretvorbo v estrogen, ki nato deluje preko GPER, zmanjšal nealkoholni steatohepatitis pri miših (47). Tvorba žolčnih kamnov, ki jo spodbuja estrogen, vključuje tako GPER kot ER, z različnimi potmi kristalizacije holesterola za dva opisana receptorja (193). Poleg tega pri miših GPER KO ni bilo nastajanja žolčnih kamnov, medtem ko se je povečalo z zdravljenjem miši divjega tipa z estrogenom in G-1 (193, 194). Nasprotno pa so selektivni antagonisti GPER, kot je analog G36, CIMBA, zmanjšali nastajanje žolčnih kamnov, kar kaže, da ciljanje na GPER z antagonisti lahko predstavlja terapevtsko priložnost za to stanje (110).
V gastrointestinalnem traktu je G-1 zmanjšal motorično funkcijo (tj. kontraktilnost mišic in s tem gibljivost), visceralno bolečino (195, 196) in reperfuzijsko poškodbo po črevesni ishemiji/reperfuziji zaradi zmanjšane poškodbe celic kript debelega črevesa (197). G-1 je prav tako zmanjšal umrljivost in poškodbe tkiva v modelu Crohnove bolezni (198), aktivacija GPER pa je prav tako oslabila črevesno vnetje v modelu akutnega kolitisa, kar je povzročilo izboljšano pregradno funkcijo črevesne sluznice (199, 200). Zdi se, da je črevesno izražanje GPER povečano pri Crohnovi bolezni (198), ulceroznem kolitisu (201) in sindromu razdražljivega črevesa (202).
GPER uravnava številne vidike delovanja ledvic, vključno z žilnim tonusom ledvične arterije in interlobularne arterije (203, 204). Estrogen in G-1 sta prek aktivacije GPER stimulirala aktivnost H plus - ATPaze v interkaliranih celicah ledvičnih tubulov (205) in uravnavala izločanje Na plus in vivo (206). Ikariin, agonist GPER, je zaščitil ledvične podocite pred apoptozo (207), pri hipertenzivni nefropatiji pa je G-1 zmanjšal proteinurijo brez spremljajočih sprememb krvnega tlaka (208, 209). G-1 je tudi zmanjšal poškodbo ledvičnih celic, ki je posledica zdravljenja z metotreksatom (210). Zanimivo je, da so miši GPER KO pokazale močno zmanjšano s starostjo povezano ledvično fibrozo in ledvično bolezen, verjetno z regulacijo Nox1, kot so opazili v srcu in ožilju, kar kaže na terapevtsko vlogo antagonistov GPER pri kronični ledvični bolezni (161, 211).
Zdi se, da mnogi koristni učinki estrogena v nereproduktivnih tkivih in boleznih vključujejo protivnetne učinke, ki so vsaj delno posredovani z GPER, ki je na splošno izražen v imunskih celicah (145). V skladu s tem so miši GPER KO pokazale povečano vnetje v številnih modelih (135, 165, 177, 179, 212), medtem ko je dajanje G-1 zmanjšalo vnetje v več mišjih modelih, vključno s pljučno alergijo s hiperodzivnostjo dihalnih poti (213), kronična debelost in sladkorna bolezen (144), vnetne črevesne bolezni (198, 214) in kronične nevrološke bolezni (212, 215–218). Med svojim delovanjem je G-1 spodbujal proizvodnjo protivnetnega citokina IL-10 v celicah Th17 (219, 220) in zmanjšal proizvodnjo citokinov, ki jih povzročajo lipopolisaharidi, v makrofagih (217). Aktivnost GPER je zadostovala tudi za zaščito razvoja ploda in sposobnosti preživetja novorojenčka v času materine okužbe in vnetja posteljice, kar kaže na terapevtsko pot z G-1 (221).
GPER ima obsežno vlogo v osrednjem in perifernem živčnem sistemu, kot dokazuje niz zaščitnih učinkov G-1 pri akutnih in kroničnih nevroloških/nevrodegenerativnih boleznih (218). V modelu multiple skleroze (eksperimentalni avtoimunski encefalomielitis) je G-1 zmanjšal resnost in odložil pojav simptomov z zmanjšanjem imunske reaktivnosti (212, 217). V modelih Alzheimerjeve in Parkinsonove bolezni ter po travmatični poškodbi možganov je G-1 izboljšal številne meritve nevroloških funkcij, deloma z zmanjšanjem nevrovnetja (222–225). V modelih travmatičnih poškodb možganov in hrbtenjače je G-1 zagotovil zaščito (223, 226, 227). V modelih možganske kapi je G-1 zmanjšal velikost infarkta, prepustnost krvno-možganske pregrade in imunosupresijo, povzročeno z možgansko kapjo (228–232) z izboljšano signalizacijo preživetja nevronov (228, 233) in izboljšano cerebralno mikrovaskularno funkcijo (231), obnovitvijo avtofagija v astrocitih (234) ali zaviranje TL4-posredovanega vnetja mikroglije (229). Aktivacija GPER z G-1 je pokazala tudi antidepresivne in anksiolitične učinke (81, 235), kar so podprle študije na podganah GPER KO (236). Kognicija, učenje, spomin in drugi vedenjski učinki (npr. lordoza) so prav tako povezani z GPER prek delovanja G-1 (222, 224, 237–241).
SKLEPI IN USMERITVE ZA PRIHODNOST
Od našega zadnjega pregleda farmakologije GPER leta 2015 (7) je bil dosežen pomemben napredek pri razumevanju funkcij GPER in potencialnih aplikacij ciljno usmerjenih ligandov GPER (tako agonistov kot antagonistov). Nove naravne in sintetične spojine so bile identificirane kot agonisti in antagonisti GPER, kar kaže na vlogo GPER pri koristnih učinkih fitoestrogenov kot tudi pri škodljivih učinkih endokrinih motilcev. Nadaljnja identifikacija novih učinkov in aplikacij GPER, ki se pogosto dokazujejo z uporabo ciljno usmerjenih ligandov GPER, v skoraj vseh telesnih sistemih, napoveduje priložnosti za terapevtski razvoj takšnih ciljnih ligandov in potrebo po ocenjevanju učinkov GPER trenutnih in razvijajočih se zdravil. . Z napredovanjem G-1 v klinična preskušanja faze I/II leta 2020 za napredovale vrste raka (https://clinicaltrials.gov/ct2/show/NCT04130516) in zanimive priložnosti pri presnovnih motnjah ter boleznih srca in ožilja, ledvic in bolezni jeter, žolčnika in žolčevodov, da ne omenjamo imunskih, nevroloških, gastrointestinalnih in nalezljivih bolezni, lahko spojine, ki ciljajo na GPER, najdejo široko uporabo v farmakopeji.
IZJAVA O RAZKRITJU
Avtorji so izumitelji ameriških patentov, povezanih z GPER-selektivnimi spojinami (7.875.721 in 8.487.100) in njihovimi aplikacijami (10.251.870; 10.471.047; 10.561.648; 10.682.341; in 10.980.785), ki so bili licencirani podjetju Sandia Biotech, GPER G{ {22}} Razvoj Group in Linnaeus Therapeutics. Avtorji so upravičeni do licenčnin, kot jih urejajo univerzitetne politike za izumitelje, vendar nimajo lastniških deležev v nobenem licenčnem podjetju.
ZAHVALA
Zahvaljujemo se vsem, ki so prispevali znanje na tem področju, in se opravičujemo tistim, katerih del zaradi dolžinskih omejitev ni bilo mogoče citirati. Avtorji so bili podprti s štipendijami Nacionalnega inštituta za zdravje R01 CA127731, CA163890 in CA194496; Dialysis Clinic Inc.; Center odličnosti biomedicinskih raziskav na področju avtofagije, vnetja in metabolizma (P20 GM121176); in Univerza New Mexico Comprehensive Cancer Center (P30 CA118100).
CITANA LITERATURA
1. Santoro N, Epperson CN, Mathews SB. 2015. Simptomi menopavze in njihovo obvladovanje. Endocrinol. Metab. Clin. North Am. 44: 497–515
2. Mehta J, Kling JM, Manson JE. 2021. Tveganja, koristi in načini zdravljenja menopavzalne hormonske terapije: trenutni koncepti. Spredaj. Endocrinol. 12: 564781
3. North Am. Menopavza Soc. Hormon Ther. Nasvet za izjavo o položaju. Panel. 2018. Izjava Severnoameriškega društva za menopavzo glede hormonske terapije za leto 2017. Menopavza 25: 1362–87
4. McDonnell DP, Wardell SE, Chang CY, Norris JD. 2021. Endokrine terapije naslednje generacije za raka dojke. J. Clin. Oncol. 39: 1383–88
5. Haines CN, Wardell SE, McDonnell DP. 2021. Trenutne in nastajajoče terapije, usmerjene na estrogenske receptorje, za zdravljenje raka dojke. Eseji Biochem. 65: 985–1001
6. Dahlman-Wright K, Cavailles V, Fuqua SA, Jordan VC, Katzenellenbogen JA, et al. 2006. Mednarodna zveza za farmakologijo. LXIV. Estrogenski receptorji. Pharmacol. Razodetje 58:773–81
7. Prossnitz ER, Arterburn JB. 2015. Mednarodna zveza za osnovno in klinično farmakologijo. XCVII. Z proteinom G sklopljeni estrogenski receptor in njegovi farmakološki modulatorji. Pharmacol. Razodetje 67:505–40
8. Fruzzetti F, Fidecicchi T, Montt Guevara MM, Simoncini T. 2021. Estetrol: nova izbira za kontracepcijo. J. Clin. med. 10:5625
9. Diamanti-Kandarakis E, Bourguignon JP, Giudice LC, Hauser R, Prins GS, et al. 2009. Kemikalije, ki povzročajo endokrine motnje: znanstvena izjava endokrinega društva. Endocr. Razodetje 30:293–342
10. Lorand T, Vigh E, Garai J. 2010. Hormonsko delovanje rastlinskega izvora in antropogenih nesteroidnih estrogenih spojin: fitoestrogeni in ksenoestrogeni. Curr. med. Chem. 17: 3542–74
11. Frye CA, Bo E, Calamandrei G, Calza L, Dessi-Fulgheri F, et al. 2012. Endokrini motilci: pregled nekaterih virov, učinkov in mehanizmov delovanja na vedenje in nevroendokrini sistem. J. Neuroendocrinol. 24: 144–59
12. Song S, Guo Y, Yang Y, Fu D. 2022. Napredek v patogenezi in terapevtskih strategijah za osteoporozo. Pharmacol. Ther. 237:108168
13. Yang F, Li N, Gaman MA, Wang N. 2021. Raloksifen ugodno vpliva na profil lipidov pri ženskah, kar pojasnjuje njegov ugoden učinek na srčno-žilno tveganje: metaanaliza randomiziranih kontroliranih preskušanj. Pharmacol. Res. 166:105512
14. Nabieva N, Fasching PA. 2021. Ponovni pregled endokrinega zdravljenja bolnic z rakom dojke – zgodovina, standard oskrbe in možnosti izboljšave. Raki 13:5643
15. Wehling M. 1994. Negenomsko delovanje steroidnih hormonov. Trendi Endocrinol. Metab. 5: 347–53
For more information:1950477648nn@gmail.com