

Od seruma/PDGF odvisna melanogena vloga majhne ravni onkogene kinaze PAK1 v celicah melanoma, dokazana z visoko občutljivim testom kinaze
Mar 18, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Povzetek:Prej smo dokazali, da je onkogena kinaza PAK4, ki jo tako melanomi kot normalni melanociti izražajo na zelo visoki ravni, bistvena za njihovomelanogeneza. V tej študiji smo z uporabo zelo občutljivega "Macaroni-Western" (IP-ATP-Glo) kinaznega testa raziskali melanogeni potencial druge onkogene kinaze PAK1, ki jo celice melanoma (B16F10) izražajo le na zelo majhni ravni. Po transfekciji celic melanoma s PAK1-shRNA za utišanje gena PAK1 je vsebnost melanina,tirozinazaaktivnost in kinazno aktivnost PAK1 primerjali med divjim tipom in transfektanti. Ugotovili smo, da (i) PAK1 pomembno aktivirajo melanogeni hormoni, kot sta IBMX (3-izobutil-1-metil ksantin) in -MSH (melanocite stimulirajoči hormon), (ii) utišanje endogenega gena PAK1 v melanomske celice preko PAK1-specifične shRNA zmanjšajo vsebnost melanina intirozinazaaktivnost v prisotnosti serumskih in melanogenih hormonov na bazalno raven, (iii) eksogeno dodan divji tip PAK1 v celicah melanoma zviša -MSH-inducibilno raven melanina za več krat, ne da bi to vplivalo na bazalno, in (iv) - Melanogeneza, povzročena z MSH/IBMX, komaj poteka v odsotnosti seruma ali PAK1, kar jasno kaže, da je PAK1 bistven predvsem za od seruma in -MSH/IBMX odvisnomelanogeneza, vendar ne bazalnega, v celicah melanoma. Izid te študije bi lahko zagotovil prvo znanstveno podlago za razlago, zakaj so številni zeliščni zaviralci PAK1-, kot so CAPE (fenetil ester kofeinske kisline), kurkumin in šikonin v kozmetiki uporabni zabeljenje kože.
Ključne besede:PAK1,melanogeneza, melanomi,tirozinaza, MITF,beljenje kože, serum
izdelki za beljenje kože cistanche
Uvod
Barvo las, očesnih šarenic in kože nadzira družina pigmentov, imenovanih melanini. Znotrajcelični vir melanina je tirozin in se pretvori v melanin z vrsto encimske oksidacije (hidroksilacije), ki vključujetirozinaza, TRP (protein, povezan s tirozinazo) 1 in TRP2. Izražanje genov, ki kodirajo te melanogene encime, zahteva vsaj dva onkogena/melanogena transkripcijska faktorja (MTF): beta-katenin in MITF (transkripcijski faktor, povezan z mikroftalmijo). Večina zeliščnih spojin vbeljenje kožeKozmetični izdelki neposredno zavirajo te melanogene encime ali znižajo MTF. Analogi tirozina, kot je kojična kislina, spadajo v prvo kategorijo (tirozinazainhibitorji), medtem ko večina ostankov, kot so CAPE (fenetil ester kofeinske kisline), kurkumin in šikonin, spada v drugo kategorijo (regulatorji MTF) (1,2). Zanimivo je, da je znano, da mnogi od teh regulatorjev MTF, vključno s CAPE, kurkuminom, šikoninom in kukurbitacinom, blokirajo onkogeno/starajočo kinazo PAK1 (RAC/CDC42-aktivirana kinaza 1) (3-5). Tako je najverjetneje PAK1 vključen v aktivacijo teh melanogenih/onkogenih transkripcijskih faktorjev v lasnih celicah, očesnih šarenicah ali kožnih melanocitih. Dejansko je vsaj beta-katenin med neposrednimi substrati PAK1 (6). PAK1 fosforilira beta-katenin pri Ser 675 za aktivacijo, kar vodi do maligne transformacije. Poleg tega je beta-katenin bistven za aktivacijo MITF, kar vodi domelanogenezaali/in onkogeneza melanocitov (7).
Zanimivo pa je, da je bilo pred kratkim razkrito, da izločitveni gen PAK1 sam po sebi pri pigmentiranih miših ne uspe proizvesti albino miši (Hong He et al., neobjavljeno opazovanje), kar jasno kaže, da je vsaj bazalna melanogeneza v lasnih celicah in očeh irises je neodvisen od PAK1, čeprav je prispevek PAK1 k kožimelanogenezaje treba še pojasniti.
Prej smo pokazali, da je onkogena kinaza PAK4 (CDC42-odvisna kinaza 4) močno izražena v celičnih linijah melanoma in normalnih melanocitov ter je odgovorna za njihovo melanogenezo, pri čemer aktivira CREB/beta-katenin-MIFT-tirozinazamedtem ko PAK2 (RAC/CDC42-aktivirana kinaza 2), še en močno izražen član družine PAK, ne igra nobene vloge pri njihovi melanogenezi (8).
V tej študiji nudimo prve biokemične dokaze o specifični vlogi druge onkogene kinaze, imenovane PAK1, v kožimelanogeneza, kljub dejstvu, da je njegova raven izražanja majhna: s shRNA povzročeno utišanje gena PAK1 v melanocitih (B16F10), pridobljenih iz mišjega melanoma, je znatno zmanjšalo inducibilno -MSH/IBMXmelanogenezana bazalno raven, medtem ko je čezmerna ekspresija gena PAK1 okrepila -MSH-inducibilno melanogenezo, ne da bi vplivala na bazalno. Poleg tega smo ugotovili, da -MSH/IBMX inducibilna melanogeneza zahteva serumski faktor, ki je najverjetneje PDGF (rastni faktor, pridobljen iz trombocitov). V mediju brez seruma samo bazalnomelanogenezapoteka.

cistanchezmanjša aktivnost tirozinaze
2. Materiali in metode
2.1. Materiali
Celice melanoma B16F10 so bile kupljene pri American Type Culture Collection (Rockville, MD, ZDA). PAK1-Plazmidi SureSilencing, privlačna transfekcija, endofree® plazmidni maxi kit so bili kupljeni pri Qiagenu (Valencia, CA 91355, ZDA). Primarna PAK1-protitelesa, biotinilirana sekundarna protitelesa, signalfireTM ECL reagent so bili pridobljeni iz Cell Signaling Technology (Danvers, MA, ZDA). Reagent Kinase Glo in ATP (ATP_Glo kinazni komplet) sta bila kupljena pri Promegi (Madison, Wisconsin, ZDA). Lipofectamine in JM109 kompetentne celice so bile kupljene pri Invitrogen in Life Technology. AG1295 in AG1478 sta bila kupljena pri Calbiochem (San Diego, CA, ZDA). Vse druge kemikalije, vključno s človeškim PDGF-bb, so bile kupljene pri Sigma-Aldrich (St. Louis, MO, ZDA).
2.2. Utišanje gena PAK1 v mišjih melanocitih (B16F10) s stabilno transfekcijo z mišjo PAK1-specifično shRNA
2.2.1. Kultura celic
Celice melanoma B16F10 smo gojili v DMEM, dopolnjenem z 10 odstotki toplotno aktiviranega FBS in 1 odstotkom penicilina/streptomicina (10,000 U/mL in 100 µg/mL) pri 37 stopinjah v vlažni atmosferi, ki je vsebovala 5 odstotkov CO2.
2.2.2. Stabilna transfekcija z mišjo PAK1-specifično shRNA
Transfekcija shRNA celične linije B16F10 je bila v bistvu izvedena po istem postopku, ki je bil prej opisan (9), vendar z mišjimi PAK1-specifičnimi shRNA (# KM04553, Qiagen). Za transfekcijo so bili uporabljeni naslednji štirje različni kloni shRNA: klon 1 (CCAGAGAAGTTGTCAGCTATT), klon 2 (CATCAAGAGTGACAATATTCT), klon 3 (GTACACACGGTTCGAGAAGAT) in klon 4 (GTACCACCAGTGTCAGAAGAT) kot tudi neciljna shRNA shCONTROL kot negativna kontrola (WT) . Vendar se je v tej študiji izkazalo, da sta klona 1 in 2 učinkovitejša od klonov 3 in 4 za utišanje mišjega gena PAK1 v tej liniji melanocitov (podatki niso prikazani). Stabilne transfektante smo izbrali v prisotnosti G418 (1 mg/mL), ki uniči več kot 99 odstotkov netransfektiranih celic.
2.2.3. Western-blot analiza ravni proteina PAK1 in in vitro test za aktivnost kinaze PAK1 v transfektantih
2.2.3.1. Western blot analiza
Da bi količinsko opredelili izjemno nizko raven PAK1 tako v kontrolni (WT) celični liniji kot v PAK1-utišanih transfektantih (odporni na G418-) z zmanjšanjem ravni "nespecifičnega šuma", smo izvedli Western blot analiza z uporabo kunčjega poliklonskega protitelesa proti PAK1 (št. 2062, Cell Signaling Technology) kot primarnega protitelesa. Na kratko, vsak klon je bil zasejan pri koncentraciji 2 × 10⁵ celic/vdolbino v ploščo s 6 vdolbinicami, predhodno kultiviran 48 ur, celični lizati pa so bili 5 minut kuhani v 25 µL pufra SDS-PAGE. Osem µL (ki vsebuje 15 µg celotnega proteina) vsakega supernatanta na režo smo uporabili za SDS-PAGE. Nitrocelulozo smo popivnali z anti-PAK1 IgG (razredčitev 1:1, 000 kot primarnim protitelesom), kot sekundarna protitelesa pa s HRP-vezanim anti-kunčjim IgG in anti-biotinskim IgG (#7074, # 7075, Cell Signaling) so bili uporabljeni za odkrivanje pasov PAK1 in -aktina, ki so bili na koncu vizualizirani s sistemom ECL iz Amershama. Western blot testi so bili reprezentativni za tri neodvisne poskuse.
2.2.3.2. "Macaroni-Western" (IP-ATP_Glo) test kinaze za PAK1 v celicah melanoma
Aktivnost kinaze PAK1 v melanocitih WT in transfektantih shRNA (SH) je bila izmerjena s precejšnjo modifikacijo (5) desetletje stare metode (ki smo jo skovali "Macaroni-Western"), ki jo je razvila italijanska skupina (1{{39). }}). Na kratko, celične linije melanoma B16F10 (WT ali SHs, 2 × 10⁵ celic/mL) so bile predhodno kultivirane na 6-plošči z vdolbinicami 24 ur. Nato smo celice 48 ur obdelali s 100 nM -MSH ali 100 µM IBMX. Celice smo uničili z liznim pufrom, ki je vseboval 50 mM Tris HCl pH 7,5 in 150 mM NaCl ter 1 odstotek Triton-X. Za imunoprecipitacijo (IP) PAK1 smo očiščene celične lizate inkubirali z anti-PAK1 IgG (razredčitev 1:50) in kroglicami proteina A-agaroze 1-2 h v hladnem prostoru z neprekinjenim stresanjem z rotacijskim mešalnikom (Nissin, Suginami-ku, Tokio, Japonska). Nastali IP (PAK1) iz vsakega lizata smo inkubirali s kompletom za testiranje ATP Glo kinaze (Promega) v prisotnosti ATP in MBP (mielinskega bazičnega proteina) 1 uro pri 37 stopinjah in preostalo raven ATP smo izmerili z ATP- odvisna luciferin-luciferazna reakcija, ki na koncu ustvari luminiscenco (10). Končno suspenzijo smo centrifugirali in supernatant prenesli na 96-ploščo z vdolbinicami za branje. Luminescenco je posnel MTP-880Lab čitalnik mikroplošč (Corona, Hitachinaka-ku, Ibaraki, Japonska) z integracijskim časom 0,5 s na vdolbinico.
2.3. Merjenje vsebnosti melanina in aktivnosti tirozinaze v transfektantih
2.3.1. Merjenje vsebnosti melanina
Vsebnost melanina je bila določena, kot je opisano prej (11). Na kratko, celice B16F10 (divji tip ali PAK1-specifični shRNA transfektanti) so bile posejane z gostoto 2 × 10⁴ celic/vdolbinico v 24-ploščo z vdolbinicami. Po 24 urah gojenja smo dodali 100 µM izobutil-1-metilksantina (IBMX) ali 100 nM -MSH in inkubirali dodatnih 72 ur pri 37 stopinjah. Celice smo dvakrat sprali s fosfatnim pufrom, nato lizirali s 500 µL raztopine, ki je vsebovala 1 M NaOH in 10 odstotkov DMSO, in inkubirali pri 80 stopinjah 1 uro, da se melanin raztopi, vsebnost melanina pa smo izmerili pri 490 nm. Za primerjavo vsebnosti melanina v celicah divjega tipa in transfektiranih celicah je bila skupna količina melanina, ki so ga proizvedli melanociti divjega tipa, upoštevana kot kontrola (100 odstotkov), tista s transfektanti pa je bila ustrezno izračunana.
2.3.2. Test za intracelularno aktivnost tirozinaze
Tirozinazaaktivnost je bila določena, kot je opisano prej (12), z rahlo spremembo. Celice B16F10 (divji tip ali transfektante) smo nasadili z gostoto 2 × 10⁴ celic/jamico in po 24 urah gojenja dodali 100 µM IBMX ali 100 nM -MSH in inkubirali dodatnih 72 ur pri 37 stopinjah. . Celice smo nato sprali z ledeno mrzlim fosfatnim pufrom in lizirali s fosfatnim pufrom (pH 6,8), ki je vseboval 1 odstotek Triton-X (500 µL/jamico). Plošče so bile zamrznjene pri -80 stopinjah 30 minut. Po odtajanju smo v vsako vdolbinico dodali 100 µL 1-odstotnega L-DOPA. Po inkubaciji pri 37 stopinjah 2 uri smo absorbanco izmerili pri 490 nm.
2.4. Merjenje vsebnosti melanina v melanocitih divjega tipa in melanocitih s prekomerno izraženostjo PAK1-po zdravljenju z -MSH
Z uporabo vektorja Myc (2 µg) smo melanocite (B16F10) začasno transfektirali bodisi z divjim tipom (WT) PAK1 bodisi s tako imenovanim "konstitutivno aktiviranim" (CA) PAK1, ki nosi mutacijo T423E. Po 3 dneh gojenja je bil vsak transfektiran klon pobran za nadaljnji poskus. Učinek prekomerne ekspresije PAK1-na vsebnost melanina je bil izmerjen z enakimi postopki, ki so bili opisani prej (8). Na kratko, melanociti, bodisi divji tip ali prekomerna ekspresija PAK1-, ki izražajo bodisi divji tip PAK1 bodisi njegov mutant CA, so bili 3 dni inkubirani s 100 nM -MSH. Celice smo lizirali z raztopino, ki je vsebovala 1 M NaOH in 20 odstotkov DMSO, da smo raztopili melanin, in njegovo vsebnost določili pri 405 nm.
2.5. Melanogeneza v mediju brez seruma
Celice B16F10 (divji tip ali PAK1-specifični shRNA transfektanti) so bile nanesene z gostoto 2 × 10⁴ celic/vdolbino v 24-ploščo z vdolbinicami v prisotnosti 10 odstotkov FBS. Po 24 urah inkubacije se gojišče zamenja z medijem brez seruma in se goji dodatnih 72 ur z ali brez 100 µM IBMX ali 100 nM -MSH za merjenje vsebnosti melanina.
2.6. Vpliv zaviralcev receptorjev PDGF/EGF na serumsko odvisno melanogenezo
2 × 10⁴ celic B16F10 smo zasejali v vsako vdolbino za 24 ur v 10-odstotnem mediju, ki je vseboval FBS, in nato gojili dodatnih 72 ur v svežem mediju, ki je vseboval 100 nM -MSH in naslednje: (1) brez seruma, (2) 10 odstotkov samega FBS, (3) 10 odstotkov FBS plus 2 µM AG1295 (zaviralec receptorja PDGF) in (4) 10 odstotkov FBS plus 400 nM AG1478 (zaviralec receptorja EGF), za merjenje vsebnosti melanina.
2.7. Statistična analiza
Podatki so izraženi kot srednje vrednosti s svojimi standardnimi napakami. Statistične primerjave so bile izvedene z enosmerno ANOVA, ki ji je sledil Duncanov test večkratnega razpona. Statistična analiza je bila izvedena z uporabo SAS (izdaja 9.2; SAS Institute, Cary, NC, ZDA) in p Manjši ali enak 0,05 je veljal za pomemben.

maca ginseng cistanche
3. Rezultati
3.1. Aktivacija PAK1 v celični liniji melanoma (B16F10) z melanogenimi hormoni
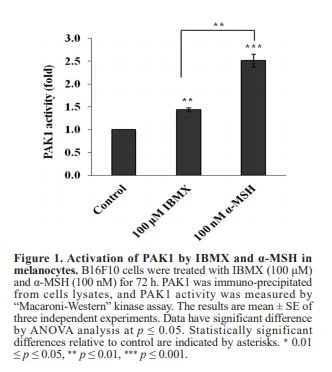
Za spodbujanjemelanogenezav melanocitih, kot je celična linija melanoma B16F10. Tako smo najprej preverili, ali lahko ti hormoni aktivirajo PAK1 v tej celični liniji, čeprav je raven beljakovin PAK1 tam izjemno nizka v primerjavi s tistimi za PAK2 in PAK4 (8). Za spremljanje sprememb aktivnosti kinaze PAK1 v celicah smo nedavno razvili zelo občutljiv/specifičen test kinaze, imenovan "Macaroni-Western" (IP ATP-Glo) protokol testa kinaze, s kombiniranjem imunoprecipitacije (IP) PAK1 iz celice lizati in komplet Promega ATP_Glo kinaze (5). Z uporabo tega testa kinaze smo ugotovili, da tako -MSH (100 nM) kot IBMX (100 µM) aktivirata PAK1 v celicah melanoma, pri čemer je -MSH močnejši od IBMX (glej sliko 1). Vendar pa moramo bralce opozoriti, da je tu prikazana večkratna aktivacija PAK1 le navidezna, saj bi se med tem dolgotrajnim IP in testom kinaze v epruveti (skupaj več kot 3 ure), ki poteka brez teh melanogenih hormonov, PAK1 postopoma normaliziral čas. Z drugimi besedami, ne moremo zamrzniti natančnega statusa kinaze PAK1 na koncu celične kulture, obdelane s temi stimulatorji, aktivacija gube pa je le podcenjen odraz aktivacije PAK1, ki je potekala med celično kulturo s temi simulatorji.
3.2. Utišanje gena PAK1 s shRNA v celični liniji mišjega melanoma
Da bi dodatno biokemično raziskali, ali PAK1 prispeva kmelanogenezav kožnih celicah (melanocitih) smo stabilno transfektirali celično linijo melanoma B16F10 z mišjo PAK1-specifično shRNA, da selektivno utišamo gen PAK1.
3.2.1. Utišanje gena PAK1 v melanocitih
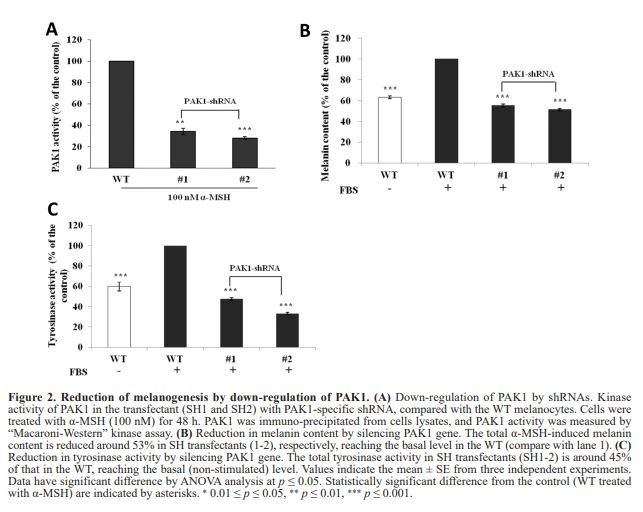
Naša predhodna Western blot analiza je pokazala, da so v dveh različnih PAK{0}}utišanih klonih (SH1 in 2) ravni proteina PAK1 znatno (za približno 75 odstotkov) zmanjšane, vendar stopnja rasti te celične linije melanoma sama po sebi ni bila znatno vplivalo dušenje PAK1 (podatki niso prikazani). Vendar je bila natančna kvantifikacija ravni proteina PAK1 s skeniranjem tega western blota precej težavna, predvsem zaradi visokega hrupa v ozadju okoli pasu PAK1 v prizadevanju, da bi vizualizirali njegove izjemno nizke ravni izražanja. Namesto tega smo s testom kinaze "Macaroni-Western" (5,10) preverili, da je aktivnost kinaze PAK1 v klonih SH1 in 2 le okoli 25-30 odstotkov tiste v kontrolnih (WT) celicah ( glej sliko 2A).
3.2.2. Zmanjšanje melanogeneze z utišanjem gena PAK1
Naše naslednje kritično vprašanje je bilo, ali takšno zmanjšanje aktivnosti kinaze PAK1 vplivamelanogeneza. Tako smo vsebnost melanina v teh klonih (SH1 in 2) primerjali s celicami melanoma divjega tipa (WT) po obdelavi vseh teh celic z -MSH, melanogenim induktorjem, 72 ur. Kot je prikazano na sliki 2B, se vsebnost melanina v teh melanocitih s pomanjkanjem PAK1- (SH1 in 2) zmanjša za približno 50 odstotkov (51-55 odstotkov) in doseže bazalno raven v WT brez melanogenega hormona. Da bi ugotovili, ali je to zmanjšanje vsebnosti melanina povezano z zaviranjem aktivnosti tirozinaze, smo izmerilitirozinazaaktivnost v celicah s pomanjkanjem PAK1- (klona SH1 in 2) v primerjavi z WT. Kot je prikazano na sliki 2C, je aktivnost tirozinaze v celicah s pomanjkanjem PAK1- le okoli 45 odstotkov (33-58 odstotkov) tiste v WT, pri čemer ponovno doseže bazalno (nestimulirano) raven, kar jasno kaže, da je PAK1 bistven za -MSH-inducirano proizvodnjo melanina ztirozinazav melanocitih. Poleg tega je bila na zelo podoben način melanogeneza, povzročena z IBMX, prav tako zmanjšana z utišanjem gena PAK1 v tej celični liniji melanoma (podatki niso prikazani). Vendar pa je ob upoštevanju naslednjih dveh dejavnikov najverjetneje le polovicamelanogenezav melanocitih je odvisen od PAK1-, preostalo (večinoma "bazično") pa je odvisno od PAK4-: (i) PAK4 je bistven tudi za melanogenezo, ki jo povzroča -MSH, v melanocitih (8) in (ii) zdi se, da je približno 25 odstotkov gena PAK1 še vedno izraženih v teh transfektantih (SH1 in 2). Vendar pa je treba še natančno razjasniti, ali je PAK1 odgovoren za hormonsko inducibilno ali bazalnomelanogeneza.
Poleg tega smo potrdili, da endogeni PAK1 znatno aktivirajo melanogeni induktorji, kot sta IBMX in -MSH, v tej celični liniji melanoma (glej sliko 1), vendar brez kakršne koli pomembne spremembe v njegovi avtofosforilaciji pri Thr 423, kot je ocenjeno z anti-pPAK1 protitelesa (podatki niso prikazani).
3.3. Povečanje -MSH-inducibilne melanogeneze s čezmerno izraženim PAK1
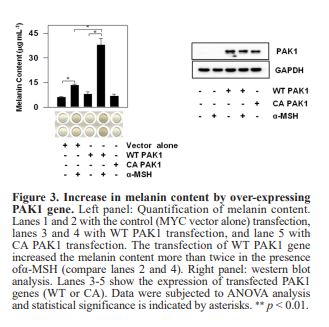
S čezmerno ekspresijo divjega tipa (WT) gena PAK1 v melanocitih (celična linija B16F10) s transfekcijo smo razkrili, da eksogeno dodan gen PAK1 večkrat poveča raven melanina, ki jo inducira -MSH (glej levo od slike 3, primerjaj progi 2 in 4), medtem ko samo po sebi skoraj ne vpliva na neodvisno "bazalno" raven melanina (primerjajte progi 1 in 3 na levi plošči slike 3), kar nakazuje, da PAK1 prispeva predvsem k odvisnosti od -MSH/IBMXmelanogeneza, in ne bazalne melanogeneze brez eksogenih stimulatorjev.
3.4. Učinek seruma na -MSH/IBMX-inducibilno melanogenezo
Še bolj zanimivo, ugotovili smo, da indukcija melanogeneze z -MSH/IBMX zahteva 10 odstotkov FBS (fetalni goveji serum) poleg PAK1. Kot je prikazano na sliki 4A, v mediju brez seruma bodisi -MSH bodisi IBMX skorajda nista povzročilamelanogenezav celicah WT, čeprav je sam 10-odstotni FBS (brez -MSH/IBMX) povzročilmelanogenezaznatno (za okoli 60 odstotkov). Zanimivo je, da je bila melanogeneza v transfektantih SH (celice s pomanjkanjem PAK1-) v prisotnosti ali odsotnosti seruma enaka kot v celicah WT v odsotnosti seruma (glejte sliko 4B), kar kaže, da je od seruma odvisna melanogeneza zahteva tudi PAK1. V podporo temu pojmu samo serum bistveno aktivira kinazno aktivnost PAK1 v celicah WT, vendar je za -MSH odvisno aktiviranje PAK1 v celicah WT potreben serum (glej sliko 4C).
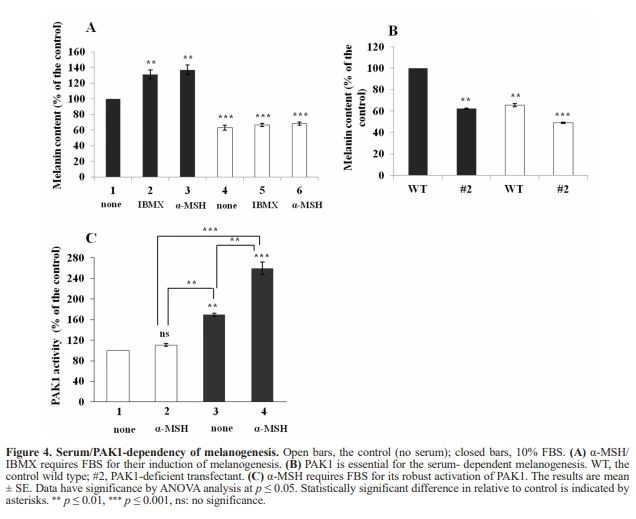
Glede kemijske narave melanogenega serumskega faktorja, ki sam aktivira PAK1, domnevamo, da je to PDGF (trombocitni rastni faktor) iz naslednjih razlogov: (i) pred več kot desetletjem smo pokazali, da je PDGF edini rastni faktor v serum, ki aktivira PAK1 s transaktivacijo receptorja EGF (epidermalnega rastnega faktorja) z receptorjem PDGF (13, 14), pred kratkim pa so drugi dokazali, da PDGF ali sam EGF dejansko stimuliramelanogenezamelanocitov (15,16).
3.5. Od seruma/PDGF-odvisne melanogeneze je potreben receptor EGF
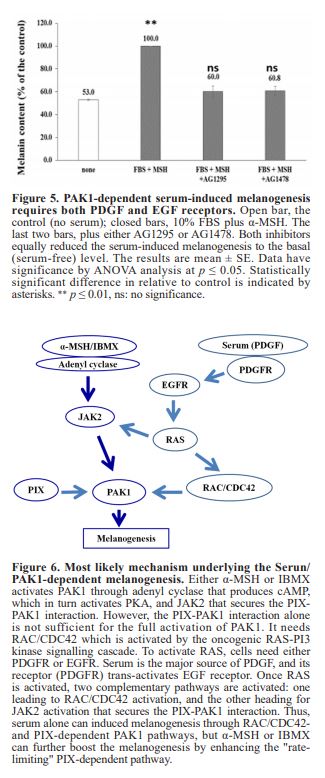
Da bi ugotovili specifično kemijsko naravo tega melanogenega serumskega faktorja, smo preizkusili učinek bodisi AG1295 (inhibitor, specifičen za receptor PDGF) bodisi AG1478 (inhibitor, specifičen za receptor EGF) na od seruma odvisenmelanogenezav melanocitih. Kot je prikazano na sliki 5, sta 2 µM AG1295 ali 400 nM AG1478 močno zmanjšala od seruma odvisnomelanogenezana raven, ki je enaka osnovni (brezserumski) melanogenezi. Ker je PDGF obilno prisoten v serumu, vendar ne EGF in AG1295 ne zavira receptorja EGF, medtem ko AG1478 ne zavira receptorja PDGF (13), je najverjetneje, da PDGF v serumu aktivira svoj receptor, ki nato transaktivira receptor EGF, ki sčasoma aktivira PAK1, ki je bistven za od seruma odvisno melanogenezo (za podrobnosti glejte sliko 6). Na podlagi te predpostavke bomo kasneje razpravljali o najverjetnejšem mehanizmu, na katerem temelji navidezna sinergija med -MSH in serumom/PDGF za aktivacijo PAK1, kar vodi do močne melanogeneze.
Nazadnje je treba poudariti, da "bazalne" vsebnosti melanina brez -MSH ni bistveno spremenil prekomerno izražen CA (konstitutivno aktiven) mutant PAK1, ki nosi mutacijo T423E (glejte levo ploščo slike 3, pas 5), kot če bi bil DN (dominantno negativen) ali neaktiven mutant. Pravzaprav -MSH sploh ni induciral fosforilacije WT PAK1 pri Thr 423 (podatki niso prikazani). Tako lahko sklepamo, da avtofosforilacija PAK1 pri Thr 423 nima nobene zveze z -MSH-inducirano aktivacijo PAK1, kar vodi do robustnegamelanogenezav celicah melanoma. Ker je dobro znano, da je mutant T423E PAK1 zelo onkogen (6), bi morda lahko avtofosforilacija na Thr 423 služila prehodu iz "melanogenega" v "onkogeno" signaliziranje.
4. Razprava
Iz našega opazovanja melanogeneze, odvisne od PAK1- in PAK4-odvisne melanogeneze v celicah melanocitov/melanoma, je treba poudariti dve potencialno zanimivi vprašanji: (i) "specifična" melanogena aktivnost PAK1 ( le malo izražen) mora biti veliko višji od PAK4 (močno izražen) v celicah melanoma. (ii) Zdi se, da je PAK1 v glavnem odgovoren za melanogenezo, ki jo povzroči serum, medtem ko je PAK4 v glavnem odgovoren za intrinzično (bazalno)melanogeneza. Z drugimi besedami, čeprav je pomanjkanje PAK4-pri miših embrionalno smrtonosno, medtem ko samo pomanjkanje PAK1- ne povzroči miši "albino", je očitna razlika v prvotni barvi kože (osnovnimelanogeneza) med temnopoltimi in belimi ljudmi je lahko na primer vsaj delno odraz razlike v ravni izražanja PAK4, kot tudi razlike v ravni melanogenostitirozinazas.
In vivo smo z uporabo miši HRM-2 (pigmentiranih, vendar brez dlak) pred kratkim dokazali, da krema, ki vsebuje 10 μM PF3758309 (inhibitor PAK1/PAK4-), zmanjša melanogenezo v njihovi koži, ki jo povzroči UV bazalni ravni, čeprav je še vedno treba pojasniti, ali je PAK4 ali PAK1 odgovoren za UV-indukcijo melanogeneze (8). Ker je PAK1 odgovoren za inducibilno, ne pa bazalno melanogenezo, bi bilo vredno preizkusiti, ali PAK1 pomembno prispeva k UV-inducibilnimelanogeneza(sončenje) tudi z uporabo redkega PAK1 KO (knock out) mutanta, pridobljenega iz seva C57B16 miši s temnimi lasmi in očmi (Hong He et al., neobjavljeno opazovanje), da bi razumeli, ali je vrsta zeliščnega PAK1 so blokatorji v kozmetiki uporabni za sredstva za zaščito pred soncem ali ne. Zanimivo je, da so poročali, da se PAK1 aktivira z UV-sevanjem in drugimi sredstvi, ki poškodujejo DNA (17).
Pokazalo se je, da -MSH aktivira Tyr kinazo JAK2 (18), ta pa aktivira PAK1 s fosforilacijo na Tyr 285 (namesto Thr 423), kar vodi do interakcije PIX-PAK1 (19). To bi lahko pojasnilo, zakaj niti -MSH-odvisna aktivacija PAK1 niti melanogeneza ne vključujeta avtofosforilacije PAK1 pri Thr 423. Tako smo nedavno raziskali, ali melanogenezo, odvisno od PAK1-, blokira močan zeliščni JAK2- zaviralec, imenovan kukurbitacin I (CBI) iz grenke melone (Goya), ki neposredno zavira JAK2 (20), in ugotovil, da CBI zaviramelanogenezav prisotnosti melanogenih hormonov za več kot 70 odstotkov, kar kaže na možnost, da CBI blokira ne le PAK1, ampak tudi PAK4 (5). V tem kontekstu bi bilo zelo zanimivo omeniti, da lahko zeliščni zaviralci PAK1-, kot so CAPE, kurkumin, šikonin in FTY 720, zavirajo z -MSH inducirano melanogenezo v mišjih ali človeških kožnih celicah le za približno 50 odstotkov tudi pri njihovih koncentracijah, kjer je PAK1 skoraj popolnoma blokiran (1,2), medtem ko sintetični pan-PAK-blokator PF3758309, ki zavira tako PAK1 kot PAK4, uničimelanogenezav kožnih celicah za približno 90 odstotkov pri 300 nM (8). Z drugimi besedami, melanogeni sistem v melanocitih, ki ga povzroča -MSH, lahko razlikuje specifične zaviralce PAK1-od zaviralcev pan PAK. Doslej niso bili ugotovljeni nobeni zeliščni PAK4-blokatorji (razen PAK4-specifičnih siRNA). Vendar se je pred kratkim pokazalo, da zelo močan kvazinoid, imenovan glaukarubinon, pridobljen iz grenkega drevesa, gojenega v amazonskih džunglah, blokira tako PAK1 kot PAK4, kar zavira rast rakavih celic trebušne slinavke in vitro in in vivo (21). Zato bi bilo zelo zanimivo preizkusiti, ali ta rastlinski zaviralec PAK skoraj popolnoma zavira melanogenezo kožnih celic, kot to počne PF3758309.
Glavni cilj te študije je bil osredotočiti se na specifično melanogeno vlogo PAK1 in ne podrobno raziskati, kako PAK1 aktivira melanogeno signalno pot, vključno z melanogenimi encimi in MTF. Vendar pa je najverjetneje, da PAK1 aktivira neposredno beta-katenin s fosforilacijo pri Ser 675, kar vodi do aktivacije MITF, ki je bistvenega pomena za izražanje genov, ki kodirajo melanogene encime, kot je npr.tirozinaza(Tyr).
Nedavno smo ugotovili, da je PAK4 (CDC42-odvisna kinaza 4) prav tako vključena vmelanogenezaiste celične linije melanoma z aktiviranjem dveh transkripcijskih faktorjev, CREB in beta-katenina, ki sta bistvena za aktivacijo MIFT (8). Ker je znano, da CREB aktivira kinaza LIM (22, 23), ki je tako kot beta-katenin med pogostimi neposrednimi substrati tako PAK1 kot PAK4 (6, 18), je najverjetneje, da imata PAK1 in PAK4 isti CREB /beta-katenin-MITF signalne poti za aktiviranje genov melanogenih encimov.
Vendar pa se lahko podrobne signalne poti, ki vodijo do -MSH/IBMX-odvisne aktivacije PAK1, bistveno razlikujejo od tistih, ki vodijo do aktivacije PAK4, predvsem zato, ker prva vključuje serumski faktor (PDGF). Sam serum je sposoben aktivirati PAK1 (13) in poveča tudi od -MSH/IBMX odvisno aktivacijo PAK1. Z drugimi besedami, obstaja jasna sinergija med serumom in temi melanogenimi hormoni pri aktivaciji PAK1 inmelanogeneza.
V nadaljevanju je naša delovna hipoteza o tem, kako bi lahko prišlo do te sinergije. Glavna signalna pot, ki vodi do aktivacije PAK1, je onkogena kaskada EGFR (receptor epidermalnega rastnega faktorja)-RAS-PI 3 kinaza-RAC/CDC42-PAK1. Vendar ta kaskada sama po sebi ne zadostuje za popolno aktivacijo. Potrebuje še en faktor, imenovan PIX, adapterski protein SH3, ki neposredno veže PAK1 prek svojega pro-bogatega motiva 18 aminokislin, imenovanega PAK18. Interakcija PIX-PAK1 potrebuje tretji protein, imenovan JAK2, Tyr-kinazo, ki fosforilira PAK1 pri Tyr 285. RAS pospešuje JAK2 prek prolaktina. Glede na nekaj predhodnih ugotovitev, ki smo jih opravili mi in drugi (13-16), je PDGF (rastni faktor, pridobljen iz trombocitov) glavni melanogeni serumski faktor(-ji), bistven za -MSH/IBMX-induciranomelanogeneza, ker aktivira svojo receptorsko (PDGFR) Tyr-kinazo, ki nato trans-aktivira EGFR (receptor epidermalnega rastnega faktorja=ErbB1) Tyr-kinazo, kar vodi do aktivacije PAK1 prek onkogene RAS-PI3 kinaze-RAC /CDC42 pot (13). Tako lahko samo PDGF v serumu aktivira PAK1 in inducira melanogenezo do polovice. Vendar pa je za popolno aktivacijo melanogeneze, odvisne od PAK1-, potreben -MSH/IBMX za aktivacijo JAK2 po poti, odvisni od cAMP (ki lahko vključuje PKA), ki sčasoma zavaruje interakcijo PIX-PAK1 (za podrobnosti, glej sliko 6).
Na koncu predstavljamo prve biokemične dokaze, ki bi lahko pojasnili, kako lahko različni zeliščni zaviralci PAK1-, kot so CAPE, kurkumin in šikonin v kozmetičnih kremah, prispevajo k "beljenje kože" učinke. Za nadaljnji dokaz ali potrditev čakamo na vrsto analognih študij s človeškimi melanociti.
maca ginseng cistanche
Reference
1. Lee JH, Jang JY, Park C, Kim BW, Choi YH, Choi BT. Kurkumin zavira melanogenezo, stimulirano s hormonom alfa-melanocite, v celicah B16F10. Int J Mol Med. 2010; 26:101-106.
2. Lee JY, Choi HJ, Chung TW, Kim CH, Jeong HS, Ha KT. Fenetil ester kofeinske kisline zavira sintezo melanina, ki jo povzroča hormon alfa-melanocite, s pomočjo zaviranja transaktivacijske aktivnosti transkripcijskega faktorja, povezanega z mikroftalmijo. J Nat Prod. 2013; 76:1399-1405.
3. Maruta H. Zeliščni terapevtiki, ki blokirajo onkogeno kinazo PAK1: praktični pristop k boleznim, odvisnim od PAK1-, in dolgoživosti. Phytother Res. 2014; 28:656-672.
4. Nguyen BCQ, Taira N, Tawata S. Več zeliščnih spojin v rastlinah Okinave neposredno zavira onkogeno/starajočo kinazo PAK1. Drug Discov Ther. 2014; 8:238-244.
5. Nguyen BCQ, Be Tu PT, Tawata S, Maruta H. Kombinacija testa imunoprecipitacije (IP)-ATP_Glo kinaze in melanogeneze za oceno močnih in varnih zaviralcev PAK1-v celični kulturi . Drug Discov Ther. 2015; 9:289-295.
6. He H, Maruta H. Onkogenost PAK in njihovih substratov. V: PAK, RAC/CDC42 (p21)-aktivirane kinaze: proti zdravljenju raka in drugih bolezni, odvisnih od PAK (Maruta H, ur.). Elsevier, Oxford, 2013; str. 23-51.
7. Widlund HR, Horstmann MA, Price ER, Cui J, Lessnick SL, Wu M, He X, Fisher DE. -S kateninom povzročena rast melanoma zahteva transkripcijski faktor, povezan z mikroftalmijo. J Cell Biol. 2002; 158:1079-1087.
8. Yun CY, You ST, Kim JH, Chung JH, Han SB, Shin EY, Kim EG. p21-aktivirana kinaza 4 kritično uravnava melanogenezo preko aktivacije poti CREB/MITF in -katenin/MITF. J Invest Dermatol. 2015; 135:1385-1394.
9. Huynh N, Liu KH, Baldwin GS, He H. P21-aktivirana kinaza 1 stimulira rast celic raka debelega črevesa in migracijo/invazijo preko ERK- in AKT-odvisnih poti. Biochim Biophys Acta. 2010; 1803:1106-1113.
10. Tagliati F, Bottoni A, Bosetti A, Zatelli MC, degli Uberti EC. Uporaba luminescentne tehnologije za razvoj testa kinaze: Cdk4 kot modelni sistem. J Pharm Biomed Anal. 2005; 39:811-814.11. Yoon NY, Eom TK, Kim MM, Kim SK. Inhibitorni učinek florotaninov, izoliranih iz Ecklonia cava, na aktivnost tirozinaze gob in tvorbo melanina v mišjih celicah melanoma B16F10. J Agric Food Chem. 2009; 57:4124-4129.
12. Li X, Guo L, Sun Y, Zhou J, Gu Y, Li Y. Baicalein zavira melanogenezo z aktivacijo signalne poti ERK. Int J Mol Med. 2010; 25:923-927.
13. He H, Levitzki A, Zhu HJ, Walker F, Burgess A, Maruta H. Rastni faktor, pridobljen iz trombocitov, potrebuje receptor za epidermalni rastni faktor, da aktivira p21-kinaze družine kinaz. J Biol Chem. 2001; 276:26741-26744.
14. Saito Y, Haendeler J, Hojo Y, Yamamoto K, Berk BC. Hetero-dimerizacija receptorja: Bistveni mehanizem za transaktivacijo receptorja epidermalnega rastnega faktorja, ki izhaja iz trombocitov. Mol Cell Biol. 2001; 21:6387-6394.
15. Hirobe T, Shibata T, Fujiwara R, Sato K. Rastni faktor, pridobljen iz trombocitov, uravnava proliferacijo in diferenciacijo človeških melanocitov na način, specifičen za stopnjo diferenciacije. J Dermatol Sci. 2016; 83:200-209.
16. Garcez RC, Teixeira BL, Schmitt Sdos S, Alvarez-Silva M, Trentin AG. Epidermalni rastni faktor (EGF) spodbuja in vitro diferenciacijo celic nevralnega grebena v nevrone in melanocite. Cell Mol Neurobiol. 2009; 29:1087-1091.
17. Roig J, Traugh JA. p21-aktivirana protein kinaza gama PAK se aktivira z ionizirajočim sevanjem in drugimi sredstvi, ki poškodujejo DNK. Podobnosti in razlike z alfa PAK. J Biol Chem. 1999; 274:31119-31122.
18. Buggy JJ. Vezava alfa-melanocite stimulirajočega hormona na njegov z G-proteinom sklopljeni receptor na B-limfocitih aktivira pot Jak/STAT. Biochem J. 1998; 331:211-216.
19. Hammer A, Oladimeji P, De Las Casas LE, Diakonova M. Fosforilacija tirozina 285 PAK1 olajša vezavo PIX/GIT1 in promet adhezije. FASEB J. 2015; 29:943-959.
20. Blaskovich MA, Sun J, Cantor A, Turkson J, Jove R, Sebti SM. Odkritje JSI-124 (kukurbitacin I), selektivnega pretvornika Janusove kinaze/signala in aktivatorja zaviralca signalne poti transkripcije 3 z močnim protitumorskim delovanjem proti človeškim in mišjim rakavim celicam pri miših. Cancer Res. 2003; 63:1270-1279.
21. Yeo D, Huynh N, Beutler JA, Christophi C, Shulkes A, Baldwin GS, Nikfarjam M, He H. Glaukarubinon in gemcitabin sinergistično zmanjšata rast raka trebušne slinavke z znižano regulacijo p21-aktiviranih kinaz. Rak Lett. 2014; 346:264-272.
22. Dan C, Kelly A, Bernard O, Minden A. Citoskeletne spremembe, ki jih uravnava serin/treonin kinaza PAK4, posredujeta LIM kinaza 1 in kofilin. J Biol Chem. 2001; 276:32115-32121.
23. Yang EJ, Yoon JH, Min DS, Chung KC. LIM kinaza 1 aktivira protein, ki se odziva na cAMP, med nevronsko diferenciacijo imortaliziranih matičnih celic hipokampusa. J Biol Chem. 2004; 279:8903-8910.


